Cómo se alimentan los corales: fotosíntesis de zooxantelas, captura de plancton, síntesis de azúcares, tipos de alimentación y guía práctica para acuarios. Nivel científico.
✍️ Autor: Roberto Parra Jiménez – Biólogo Marino | Universidad de Hawaii (UH Mānoa) 📅 Actualizado: Octubre 2026 ⏱️ Tiempo de lectura: 32 minutos 🎓 Nivel: Divulgación científica avanzada / Investigación profesional
📋 ÍNDICE DE CONTENIDOS
- 🔍 Introducción: El Coral como Organismo Mixótrofo
- ☀️ Vía Autotrófa: La Fotosíntesis Simbiótica
- 🧪 Bioquímica de la Síntesis de Azúcares y Producción Energética
- 🦐 Vía Heterótrofa: Captura Activa de Presas
- 🧬 Absorción de Materia Orgánica Disuelta (DOM)
- 📊 Tipos de Corales Según su Alimentación
- 🕐 ¿Cuándo y Cómo Comen los Corales?
- 📍 Posición en el Arrecife y Estrategia Alimentaria
- 🔄 Transferencia de Nutrientes: De la Zooxantela al Coral
- 📐 Balance Energético del Holobionte
- 🐠 Alimentación de Corales en Acuarios: Guía Práctica
- 💎 Los Consejos Más Valiosos de un Biólogo Marino
- 📌 Resumen y Conclusiones
- 👨🔬 Sobre el Autor
- 📚 Referencias Bibliográficas
🔍 1. INTRODUCCIÓN: EL CORAL COMO ORGANISMO MIXÓTROFO
A diferencia de lo que muchos creen, un coral no es un organismo exclusivamente fotosintético ni exclusivamente carnívoro. Es un mixótrofo: combina múltiples estrategias nutricionales simultáneamente para obtener la energía y los nutrientes necesarios para crecer, reproducirse y construir el arrecife.
La nutrición del coral se articula en torno a tres vías fundamentales que operan de forma simultánea y complementaria. La primera es la vía autotrófa, protagonizada por las zooxantelas simbióticas que, mediante la fotosíntesis, generan entre el 70% y el 95% de la energía que el coral necesita. La segunda es la vía heterótrofa, por la cual el coral captura activamente presas del plancton utilizando sus tentáculos y cnidocitos, aportando entre un 5% y un 30% de la energía total. La tercera es la absorción de materia orgánica disuelta (DOM), un mecanismo pasivo por el cual el tejido coralino incorpora aminoácidos, glucosa y otras moléculas directamente del agua, contribuyendo con un 5% a un 15% adicional.
🗣️ «Entender la alimentación del coral es entender el arrecife entero. Cada molécula de glicerol que una zooxantela transfiere a su coral, cada copépodo que un tentáculo captura, cada aminoácido que se absorbe del agua, es un eslabón en la cadena que sostiene el ecosistema más biodiverso del océano. La nutrición coralina no es solo biología celular; es ecología, evolución y bioenergética entrelazadas.» — Roberto Parra Jiménez
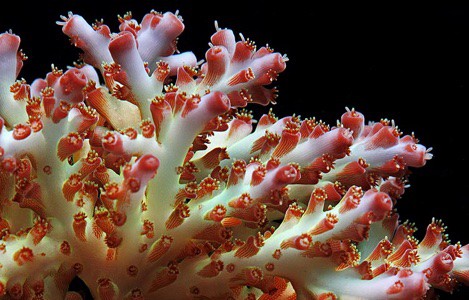
La imagen que abre este artículo muestra un pólipo de Euphyllia glabrescens con sus tentáculos completamente extendidos durante la noche, capturando activamente zooplancton bajo iluminación actínica. Obsérvese cómo cada tentáculo está armado de cnidocitos listos para disparar, mientras el tejido del pólipo alberga en su interior millones de zooxantelas que, durante el día, realizarán la fotosíntesis que alimenta al coral.
☀️ 2. VÍA AUTOTRÓFA: LA FOTOSÍNTESIS SIMBIÓTICA
La fotosíntesis de las zooxantelas (Symbiodiniaceae) es la fuente energética principal de los corales hermatípicos (constructores de arrecife). Sin esta simbiosis, los corales tropicales no podrían calcificar a las tasas necesarias para formar arrecifes.
Las zooxantelas son dinoflagelados unicelulares de entre 8 y 15 micrómetros de diámetro que residen dentro de las células gastrodérmicas del coral, concretamente en vacuolas especializadas llamadas simbiosomas. En un centímetro cuadrado de tejido coralino sano pueden habitar entre uno y cinco millones de estas microalgas, cada una equipada con cloroplastos que contienen clorofila a, clorofila c₂, peridinina y diadinoxantina como pigmentos fotosintéticos principales.
El proceso fotosintético se desarrolla en dos fases claramente diferenciadas. La fase luminosa ocurre en las membranas tilacoidales de los cloroplastos: los fotones de luz visible (400-700 nm) son captados por los pigmentos antena y canalizados hacia los centros de reacción del Fotosistema II (P680) y del Fotosistema I (P700). La energía lumínica excita electrones que recorren una cadena de transporte (citocromo b6f, plastoquinona, ferredoxina), generando un gradiente de protones que la ATP sintasa aprovecha para producir ATP (fotofosforilación). Simultáneamente, el agua se fotoliza (2 H₂O → O₂ + 4H⁺ + 4e⁻), liberando oxígeno como subproducto, y el NADP⁺ se reduce a NADPH. Los productos netos de esta fase son ATP, NADPH y O₂.
La fase oscura o Ciclo de Calvin-Benson tiene lugar en el estroma del cloroplasto. La enzima RuBisCO (ribulosa-1,5-bisfosfato carboxilasa/oxigenasa) fija el CO₂ atmosférico sobre moléculas de ribulosa-1,5-bisfosfato, generando 3-fosfoglicerato (3-PGA). Este compuesto, utilizando el ATP y el NADPH producidos en la fase luminosa, se reduce a gliceraldehído-3-fosfato (G3P). De cada seis moléculas de G3P producidas, una sale del ciclo como producto neto para la síntesis de compuestos orgánicos, mientras las cinco restantes regeneran la ribulosa-1,5-bisfosfato para continuar el ciclo. El balance global de una vuelta completa del ciclo es: 6 CO₂ + 18 ATP + 12 NADPH → 1 glucosa + 18 ADP + 12 NADP⁺ + 6 Pi.
La eficiencia fotosintética de una zooxantela sana se mide mediante la fluorescencia de clorofila. El parámetro Fv/Fm (eficiencia cuántica máxima del PSII) oscila entre 0,60 y 0,70 en condiciones óptimas. Valores inferiores a 0,50 indican estrés; valores por debajo de 0,30 señalan un blanqueamiento inminente o en curso. La tasa de fotosíntesis bruta en un coral tropical sano bajo luz plena alcanza entre 5 y 25 µmol de O₂ por cm² de tejido por hora.
🧪 3. BIOQUÍMICA DE LA SÍNTESIS DE AZÚCARES Y PRODUCCIÓN ENERGÉTICA
Una vez que el Ciclo de Calvin produce G3P, esta molécula de tres carbonos se convierte en el punto de partida de múltiples vías biosintéticas. La glucosa (C₆H₁₂O₆) se sintetiza por condensación de dos moléculas de G3P y puede almacenarse como almidón en el cloroplasto o exportarse al coral. El glicerol (C₃H₈O₃), un poliol derivado directamente de la reducción del G3P, es el compuesto más abundante transferido al hospedador, representando entre el 40% y el 70% del carbono fotosintetizado que llega al coral. Los aminoácidos (alanina, glicina, serina, glutamato) se sintetizan a partir de intermediarios del ciclo de Calvin combinados con el amonio excretado por el coral. Los lípidos (ácidos grasos saturados e insaturados, ceras) se ensamblan a partir de acetil-CoA derivado del piruvato.
En cuanto a la producción de energía metabólica (ATP), tanto la zooxantela como el coral realizan respiración celular aerobia en sus mitocondrias. La ecuación global es: C₆H₁₂O₆ + 6 O₂ → 6 CO₂ + 6 H₂O + 36-38 ATP. Este proceso se desarrolla en tres etapas: la glucólisis en el citoplasma (glucosa → 2 piruvato + 2 ATP + 2 NADH), el ciclo de Krebs en la matriz mitocondrial (piruvato → CO₂ + NADH + FADH₂ + GTP) y la cadena de transporte de electrones en la membrana mitocondrial interna, donde el NADH y el FADH₂ ceden sus electrones para generar entre 34 y 36 ATP adicionales por molécula de glucosa.
El balance energético diario del coral presenta una marcada asimetría entre el día y la noche. Durante las 10-12 horas de luz, la fotosíntesis supera ampliamente a la respiración, con una producción neta de oxígeno de +15 a +25 µmol O₂/cm²/h. La calcificación es activa y alcanza tasas 3 a 10 veces superiores a las nocturnas, porque la absorción de CO₂ por fotosíntesis eleva el pH en el espacio subcalicoblástico, favoreciendo la precipitación de aragonita (Ca²⁺ + CO₃²⁻ → CaCO₃). Durante las 12-14 horas de oscuridad, la fotosíntesis cesa, la respiración consume entre 2 y 5 µmol O₂/cm²/h, y el coral recurre a sus reservas de glucógeno y lípidos. Sin embargo, la calcificación no se detiene por completo: continúa a un ritmo reducido gracias a la energía almacenada. El ratio Producción:Respiración (P:R) de un coral sano en 24 horas se sitúa entre 2,5:1 y 5:1.
La energía asimilada se distribuye aproximadamente de la siguiente manera: un 40-50% se destina a la respiración y mantenimiento celular; un 20-30% a la calcificación del esqueleto; un 10-15% al crecimiento tisular; un 5-15% a la reproducción (con picos estacionales antes del desove); un 5-10% a la producción de mucus protector; un 2-5% a la síntesis de compuestos defensivos (MAAs, terpenos); y un 5-10% al almacenamiento como reservas (glucógeno, lípidos).
🦐 4. VÍA HETERÓTROFA: CAPTURA ACTIVA DE PRESAS
La segunda gran vía nutricional del coral es la captura activa de presas del plancton y la materia orgánica particulada. Aunque energéticamente minoritaria en corales hermatípicos (5-30% del total), la heterotrofía aporta aminoácidos esenciales, ácidos grasos y micronutrientes que la fotosíntesis no puede sintetizar.
El mecanismo principal de captura es el cnidocito, una célula especializada del ectodermo que alberga un nematocisto: una cápsula que contiene un filamento tubular enrollado bajo una presión osmótica extrema (hasta 150 atmósferas). Cuando un estímulo mecánico o químico activa el cnidocito, se produce una despolarización de membrana que desencadena la entrada masiva de calcio. En menos de tres milisegundos, el nematocisto evierte su filamento con una aceleración superior a cinco millones de veces la gravedad (5.410.000 g), clavándose en la presa e inyectando un cóctel de toxinas (porinas, neurotoxinas, fosfolipasas) que paralizan o matan al organismo capturado. Los tentáculos transportan entonces la presa inmovilizada hacia la boca, donde es introducida en la cavidad gastrovascular para su digestión.
Además de los cnidocitos, los corales emplean otros dos mecanismos de captura. El mucus producido por las células glandulares del ectodermo atrapa partículas pequeñas (fitoplancton, bacterias, detritos) que son transportadas por los cilios hacia la boca. Este mecanismo es especialmente importante en corales masivos y encrustantes con tentáculos cortos. La interceptación pasiva por flujo es el tercer mecanismo: la morfología ramificada de corales como Acropora o Pocillopora crea microturbulencias que concentran partículas planctónicas directamente sobre los tentáculos.
La dieta del coral incluye fitoplancton (diatomeas, dinoflagelados, cianobacterias de 1-50 µm), zooplancton microscópico (rotíferos, copépodos nauplios, tintínidos de 50-200 µm), zooplancton mesoscópico (copépodos adultos, larvas de crustáceos de 200-2000 µm), bacterias libres (0,5-5 µm), materia orgánica particulada (detritos, agregados de 1-100 µm) y, ocasionalmente en LPS de gran tamaño, peces pequeños de más de un centímetro.
La digestión combina una fase extracelular (enzimas proteolíticas, lipasas y amilasas secretadas al celenteron) con una fase intracelular (fagocitosis por células nutritivo-musculares). El proceso completo tarda entre 2 y 24 horas dependiendo del tamaño de la presa. Los nutrientes asimilados (aminoácidos, glucosa, ácidos grasos) atraviesan la mesoglea y se distribuyen a toda la colonia a través del coenosarco.
🧬 5. ABSORCIÓN DE MATERIA ORGÁNICA DISUELTA (DOM)
La tercera vía nutricional, a menudo subestimada, es la absorción directa de materia orgánica disuelta a través del ectodermo. El agua del arrecife contiene una sopa diluida de moléculas orgánicas: aminoácidos libres (glicina, alanina, glutamato, serina), monosacáridos (glucosa, galactosa), urea, ácidos grasos de cadena corta y vitaminas (B₁₂, tiamina, biotina).
El coral absorbe estas moléculas mediante transportadores específicos en la membrana plasmática de sus células ectodérmicas. Los aminoácidos entran por transportadores activos dependientes de sodio; la glucosa por transportadores GLUT; la urea por difusión facilitada. La tasa de absorción oscila entre 1 y 10 µmol de carbono por cm² de tejido por hora, dependiendo de la concentración ambiental.
Esta vía contribuye con un 5-15% de la nutrición total en corales hermatípicos tropicales, pero puede alcanzar hasta el 30% en corales de aguas profundas o mesofóticas donde la luz es limitante. En acuarios de arrecife, la dosificación regular de aminoácidos líquidos replica esta vía natural y mejora la coloración y la vitalidad de los corales.
📊 6. TIPOS DE CORALES SEGÚN SU ALIMENTACIÓN
La estrategia nutricional de un coral está determinada fundamentalmente por la presencia o ausencia de zooxantelas, y por la morfología de la colonia. A continuación se presenta la clasificación completa.
Los corales mixótrofos hermatípicos constituyen la mayoría de los corales tropicales de arrecife. Poseen zooxantelas y combinan la fotosíntesis (60-90% de la energía) con la captura de plancton (5-30%) y la absorción de DOM (5-15%). Dentro de este grupo se encuentran los SPS (Acropora, Montipora, Seriatopora, Pocillopora), que dependen en un 75-90% de la fotosíntesis y complementan con plancton nocturno; los LPS (Euphyllia, Acanthastrea, Favia, Cynarina), con un 60-80% de autotrofía y una heterotrofía más activa gracias a sus pólipos grandes y tentáculos largos; y los corales blandos (Sarcophyton, Sinularia, Xenia), con un perfil similar al de los LPS pero con captura por mucus más que por tentáculos.
Los corales heterótrofos obligados carecen completamente de zooxantelas y dependen al 100% de la captura de presas y la absorción de DOM. En este grupo se incluyen los corales de aguas frías (Lophelia pertusa, Madrepora oculata, Desmophyllum dianthus) que habitan entre 200 y 2.000 metros de profundidad; los corales negros (Leiopathes, Antipathes) con esqueleto proteico y alimentación por filtración; y corales tropicales azooxantelados como Dendronephthya y Tubastraea (coral sol), que extienden sus tentáculos exclusivamente de noche para capturar zooplancton.
Los corales mixótrofos facultativos pueden perder o adquirir zooxantelas según las condiciones ambientales. Algunas especies de Fungia y Goniopora pueden blanquearse y sobrevivir temporalmente como heterótrofos, recuperando sus zooxantelas cuando las condiciones mejoran. Esta flexibilidad les confiere una resiliencia nutricional superior ante perturbaciones.
🕐 7. ¿CUÁNDO Y CÓMO COMEN LOS CORALES?
La alimentación del coral sigue un ritmo circadiano estrictamente sincronizado con el ciclo de luz. Durante el día, cuando la irradiancia es máxima, las zooxantelas fotosintetizan a plena capacidad. Los pólipos de los SPS se contraen parcialmente (los tentáculos se acortan y el tejido se compacta) para reducir la exposición a la luz excesiva y minimizar el estrés fotooxidativo. La captura heterótrofa diurna es mínima en SPS, aunque los LPS y los corales blandos mantienen sus tentáculos extendidos y capturan activamente también de día.
Al atardecer, cuando la intensidad lumínica desciende, los pólipos inician su extensión. Los tentáculos se alargan, los cnidocitos se posicionan en la superficie y el coral se prepara para la fase de captura nocturna. Durante la noche (12-14 horas de oscuridad), la fotosíntesis cesa completamente y la captura heterótrofa alcanza su máximo. El zooplancton del arrecife realiza su migración vertical nocturna: sube desde aguas profundas hacia la superficie, proporcionando una abundante fuente de alimento a los corales. Los pólipos están completamente extendidos, los tentáculos barren el agua y los cnidocitos disparan ante el menor contacto.
Al amanecer, el ciclo se invierte: la luz estimula la fotosíntesis, los pólipos se contraen progresivamente y la captura disminuye hasta el próximo atardecer.
Los corales sin zooxantelas (Tubastraea, Dendronephthya, Lophelia) tienen los pólipos extendidos permanentemente (en el caso de los profundos) o exclusivamente de noche (en el caso de los tropicales azooxantelados), ya que toda su alimentación depende de la captura de presas.
Los factores que modulan la alimentación incluyen la corriente (que trae plancton pero que, si es excesiva, impide la captura), la temperatura (que acelera el metabolismo y la demanda energética), el ciclo lunar (que influye en la abundancia de zooplancton y en la reproducción) y la presencia de peces (cuyos excrementos y detritos enriquecen el agua en nutrientes).
📍 8. POSICIÓN EN EL ARRECIFE Y ESTRATEGIA ALIMENTARIA
La posición que un coral ocupa en el arrecife determina directamente su estrategia alimentaria, su morfología y su fisiología. El arrecife puede dividirse en zonas con condiciones muy distintas, y cada zona favorece un tipo de coral con adaptaciones nutricionales específicas.
En la cresta arrecifal (0-2 metros), expuesta al oleaje directo y a la máxima irradiancia, dominan los corales masivos y encrustantes (Porites, Millepora, Pocillopora). Su alimentación es predominantemente fotosintética (la luz es máxima), complementada con captura por mucus y cnidocitos. Su morfología compacta y resistente les permite soportar el embate de las olas sin ser arrancados.
En la pendiente externa (2-20 metros), con luz abundante pero menor impacto directo del oleaje, dominan los SPS ramificados y tabulares (Acropora, Montipora, Seriatopora). Su morfología ramificada maximiza la superficie expuesta tanto a la luz (para la fotosíntesis) como al flujo (para la interceptación de plancton). La alimentación es mixta: fotosíntesis dominante de día, captura de zooplancton de noche.
En la plataforma arrecifal y la laguna (1-10 metros), con luz moderada y flujo reducido, predominan los LPS (Euphyllia, Favia, Acanthastrea) y los corales blandos (Sarcophyton, Sinularia). Sus pólipos grandes y tentáculos largos les permiten una captura heterótrofa más activa, compensando la menor intensidad lumínica.
En la zona mesofótica (30-150 metros), la luz se reduce drásticamente. Los corales de esta zona (Leptoseris, Agaricia, Pachyseris) tienen formas foliáceas o plateadas que maximizan la captación de la poca luz disponible. Su alimentación combina una fotosíntesis reducida con una mayor dependencia de la DOM y la captura de plancton.
En las aguas profundas (>150 metros), sin luz alguna, los corales son exclusivamente heterótrofos (Lophelia, Madrepora, Leiopathes). Sus pólipos están permanentemente extendidos, sus tentáculos son proporcionalmente más largos y su metabolismo está optimizado para la captura de las escasas partículas que las corrientes profundas transportan.
🔄 9. TRANSFERENCIA DE NUTRIENTES: DE LA ZOOXANTELA AL CORAL
El aspecto más extraordinario de la nutrición coralina es la transferencia de fotosintatos de la zooxantela al hospedador. Entre el 70% y el 95% del carbono fijado por fotosíntesis no se queda en la microalga, sino que cruza la membrana del simbiosoma y pasa al citoplasma del cnidocito del coral.
El glicerol es el compuesto dominante, representando entre el 40% y el 70% del carbono transferido. La glucosa aporta un 10-20% adicional. Los aminoácidos (alanina, glicina, serina, glutamato) constituyen un 5-10%. Los lípidos (ácidos grasos, ceras) representan un 5-15%. Los ácidos orgánicos (succínico, málico) completan el cuadro con un 2-5%.
Los mecanismos de transferencia incluyen la difusión pasiva (glicerol y glucosa atraviesan la membrana por gradiente de concentración), el transporte activo (aminoácidos y lípidos requieren transportadores específicos), la exocitosis (vesículas de la zooxantela se fusionan con la membrana del simbiosoma) y, en menor medida, la digestión selectiva de zooxantelas por parte del coral cuando la densidad simbiótica excede el óptimo.
El ciclo de nutrientes dentro del holobionte es prácticamente cerrado. El coral excreta amonio (NH₄⁺) y fosfato (PO₄³⁻) como productos de su metabolismo proteico y energético. Las zooxantelas reabsorben estos compuestos y los incorporan a aminoácidos y ácidos nucleicos, que luego transfieren parcialmente de vuelta al coral. Las bacterias del microbioma fijan nitrógeno atmosférico (N₂), nitrifican y desnitrifican, completando el ciclo. Este reciclaje ultraeficiente es lo que permite a los arrecifes prosperar en aguas oligotróficas donde la concentración de nitratos es inferior a 0,5 µM y la de fosfatos a 0,1 µM.
📐 10. BALANCE ENERGÉTICO DEL HOLOBIONTE
El balance energético del coral está íntimamente ligado a la temperatura. A 22 °C, la fotosíntesis es moderada y la respiración baja, con un ratio P:R de aproximadamente 3:1. Entre 25 y 26 °C (rango óptimo), la fotosíntesis alcanza su máximo mientras la respiración se mantiene controlada, con un P:R de 4:1 a 5:1. A 29 °C, ambas tasas aumentan pero la respiración se acelera proporcionalmente más, reduciendo el P:R a 2:1. A 31 °C, el estrés térmico comienza a dañar el PSII de las zooxantelas, la fotosíntesis cae y el P:R se acerca a 1:1. Por encima de 33 °C, la fotosíntesis colapsa, la respiración se dispara y el P:R cae por debajo de 1: el coral consume más de lo que produce, entra en déficit energético y, si la situación persiste, expulsa las zooxantelas (blanqueamiento).
En cuanto a la calcificación, la fotosíntesis la acelera entre 3 y 10 veces respecto a la oscuridad. El mecanismo es doble: por un lado, la absorción de CO₂ por fotosíntesis desplaza el equilibrio del carbonato hacia CO₃²⁻, aumentando la saturación de aragonita en el espacio subcalicoblástico. Por otro, el ATP fotosintético alimenta las Ca²⁺-ATPasas que bombean calcio activamente. Un coral sano en condiciones óptimas calcifica entre 1 y 15 cm de esqueleto por año (SPS) o entre 0,5 y 3 cm (LPS).
La reproducción tiene un coste energético significativo. En las semanas previas al desove, el coral desvía entre un 10% y un 20% de su energía asimilada hacia la producción de gametos. Esto puede reducir temporalmente la tasa de crecimiento y la calcificación. Tras el desove, el coral necesita varias semanas para recuperar sus reservas lipídicas y glucídicas.
🐠 11. ALIMENTACIÓN DE CORALES EN ACUARIOS: GUÍA PRÁCTICA
En un acuario de arrecife, la alimentación de los corales debe replicar las tres vías nutricionales naturales. La vía autotrófa se cubre con una iluminación adecuada (PAR entre 80 y 450 µmol/m²/s según el tipo de coral, con espectro rico en azules de 420-470 nm). La vía heterótrofa se complementa con la administración de alimentos específicos. La vía DOM se cubre con la dosificación de aminoácidos y aditivos orgánicos.
Los SPS (Acropora, Montipora, Seriatopora) obtienen el 75-85% de su energía de la luz. La alimentación complementaria consiste en fitoplancton (Nannochloropsis, Isochrysis) 3-5 veces por semana y aminoácidos líquidos 2-3 veces por semana. El zooplancton (copépodos, rotíferos) puede ofrecerse 2 veces por semana.
Los LPS (Euphyllia, Acanthastrea, Favia) necesitan un 60-75% de luz y una alimentación heterótrofa más sustancial: mysis, artemia enriquecida, pellets específicos (Reef Roids, Coral Frenzy) o trozos de pescado, ofrecidos 1-2 veces por semana directamente sobre los tentáculos con una pipeta.
Los corales blandos (Sarcophyton, Sinularia, Xenia) son los menos exigentes: luz moderada y fitoplancton ocasional son suficientes. No requieren alimentación dirigida con presas grandes.
Los corales sin zooxantelas (Tubastraea, Dendronephthya) son un caso aparte: necesitan alimentación heterótrofa diaria (3-5 veces al día) con plancton, artemia y mysis. Son extremadamente difíciles de mantener a largo plazo en acuario y solo se recomiendan para acuaristas muy experimentados con sistemas dedicados.
El mejor momento para alimentar es entre 1 y 2 horas después de apagar la luz, simulando la noche natural. Se apagan las bombas de flujo durante 5-10 minutos para evitar que la comida se disperse, se dirige el alimento hacia los pólipos con una pipeta o jeringa, y se espera 10-15 minutos antes de reactivar el flujo. Nunca se debe alimentar con luz plena (los pólipos están contraídos) ni sobrealimentar (el exceso genera nitratos y fosfatos).
💎 12. LOS CONSEJOS MÁS VALIOSOS DE UN BIÓLOGO MARINO
🏆 Consejo #1: La fotosíntesis es el 80%, pero el 20% importa
«Muchos acuaristas creen que con luz suficiente el coral no necesita nada más. Es un error. Ese 5-30% de heterotrofía aporta aminoácidos esenciales, ácidos grasos y micronutrientes que la fotosíntesis no puede sintetizar. Un coral alimentado crece más rápido, tiene mejor coloración y es más resistente al estrés.»
🏆 Consejo #2: El flujo es el camión de reparto del arrecife
Sin flujo, no hay plancton que llegue a los tentáculos, no hay intercambio gaseoso, no hay eliminación de desechos. La regla es mantener entre 20 y 80 veces el volumen del acuario por hora, con flujo turbulento y variable que simule el oleaje natural. Ningún rincón del acuario debe tener agua estancada.
🏆 Consejo #3: La luz alimenta, pero también puede matar
Luz insuficiente significa zooxantelas inactivas y coral debilitado. Luz excesiva significa fotooxidación, producción de ROS y blanqueamiento. La solución es medir el PAR con un sensor cuantificador y aclimatar siempre los corales nuevos durante 3-4 semanas antes de colocarlos en su posición definitiva.
🏆 Consejo #4: Los corales sin zooxantelas son otra historia
Tubastraea, Dendronephthya y Lophelia no tienen zooxantelas. Necesitan alimentación heterótrofa 100%, varias veces al día. Si no puedes comprometerte a alimentar 3-5 veces diarias, no mantengas estas especies. En el arrecife, estos corales viven en cuevas, voladizos y profundidades donde el plancton es abundante; replicar eso en un acuario es un desafío enorme.
🏆 Consejo #5: La noche es la hora de comer
En la naturaleza, la mayoría de los corales extienden sus pólipos de noche. El zooplancton realiza su migración vertical nocturna. En el acuario, alimenta después de apagar la luz. Simula el ciclo natural y maximizarás la captura.
🏆 Consejo #6: No conviertas tu acuario en un comedor de peces
El exceso de comida se descompone generando amoníaco, nitritos, nitratos y fosfatos. La regla es simple: solo la cantidad que los corales capturen en 15-20 minutos. Un skimmer eficiente y cambios de agua del 10-20% semanal son imprescindibles.
🏆 Consejo #7: Los aminoácidos son el suplemento más subestimado
Los aminoácidos libres son absorbidos directamente por el ectodermo del coral. Mejoran la coloración, estimulan la producción de mucus y apoyan la síntesis proteica. Dosisifica 2-3 veces por semana siguiendo las instrucciones del fabricante. No excedas la dosis: el exceso provoca proliferación bacteriana y turbidez.
🏆 Consejo #8: Observa los pólipos; son el indicador definitivo
Pólipos extendidos, buen color y crecimiento activo significan un coral bien alimentado. Pólipos retraídos durante el día son normales en SPS. Pólipos retraídos las 24 horas con pérdida de color señalan un problema de luz, flujo, química del agua o enfermedad. Observa diariamente y conoce el comportamiento normal de cada coral.
🏆 Consejo #9: La posición en el acuario importa tanto como la alimentación
Un coral bien alimentado pero mal posicionado (en sombra, sin flujo, con sedimentación) no prosperará. Replica la posición del arrecife: SPS arriba con luz y flujo, LPS en zona media, blandos abajo o en sombra parcial. Aclimata siempre antes de colocar en posición definitiva.
🏆 Consejo #10: Entiende que alimentas un holobionte, no un organismo
«Cuando alimentas un coral, no solo alimentas al animal. Alimentas a las zooxantelas, a las bacterias, a todo el microbioma. Cada molécula que entra en el sistema tiene consecuencias en cascada. Alimentar un coral es gestionar un microecosistema.» — Roberto Parra Jiménez
📌 13. RESUMEN Y CONCLUSIONES
La alimentación del coral es un proceso de una complejidad y elegancia extraordinarias, perfeccionado a lo largo de 240 millones de años de simbiosis. Las tres vías nutricionales (autotrofía fotosintética, heterotrofía por captura y absorción de DOM) operan simultáneamente y se complementan para sostener la vida del holobionte. La fotosíntesis de las zooxantelas proporciona la mayor parte de la energía y facilita la calcificación; la captura de plancton aporta nutrientes esenciales; y la absorción de DOM completa el cuadro nutricional.
El ritmo circadiano, la posición en el arrecife, la temperatura, el flujo y la química del agua modulan cada aspecto de la alimentación coralina. En acuarios, replicar estas condiciones con fidelidad es la clave del éxito. Un coral bien alimentado es un coral que crece, que se reproduce, que resiste el estrés y que contribuye a la salud del microecosistema que lo rodea.
🗣️ «Cada vez que observo un pólipo de Euphyllia capturar un copépodo bajo la luz de mi linterna de buceo nocturno, veo 500 millones de años de evolución perfeccionando un mecanismo de captura. Cada vez que mido la tasa de fotosíntesis de una colonia de Acropora en el HIMB, veo la maquinaria bioquímica más eficiente del planeta trabajando en silencio. La alimentación del coral no es un proceso simple. Es una sinfonía de luz, química, física y biología que lleva sonando desde el Triásico.» — Roberto Parra Jiménez
❓ PREGUNTAS FRECUENTES (FAQ)
🔹 ¿Los corales comen de día o de noche?
La fotosíntesis ocurre exclusivamente de día. La captura de presas es predominantemente nocturna en la mayoría de especies, aunque LPS y blandos también capturan de día. Los corales sin zooxantelas se alimentan exclusivamente de noche o de forma continua (en aguas profundas).
🔹 ¿Un coral puede sobrevivir solo con luz, sin alimentarlo?
Sí, pero de forma subóptima. Los corales hermatípicos obtienen el 70-95% de su energía de la fotosíntesis. Sin embargo, la heterotrofía aporta aminoácidos y ácidos grasos esenciales. Un coral alimentado crece más rápido y es más resistente.
🔹 ¿Qué comen exactamente las zooxantelas?
Las zooxantelas son autótrofas: realizan fotosíntesis con CO₂, agua y luz. Además absorben amonio y fosfato excretados por el coral. No consumen presas.
🔹 ¿Los corales tienen estómago?
No. Poseen una cavidad gastrovascular donde ocurre la digestión extracelular e intracelular. Los residuos se expulsan por la misma boca.
🔹 ¿Cuánto tarda un coral en digerir una presa?
Entre 2 y 24 horas según el tamaño. Un copépodo pequeño: 2-4 horas. Un mysis: 12-24 horas.
🔹 ¿Los corales pueden morir de hambre?
Sí. Los corales sin zooxantelas mueren en semanas sin plancton. Los hermatípicos pueden sobrevivir 4-8 semanas tras un blanqueamiento antes de morir por inanición.
🔹 ¿El glicerol es un azúcar?
El glicerol es un poliol (alcohol de azúcar), no un azúcar en sentido estricto. Es el principal fotosintato transferido al coral y se utiliza como combustible respiratorio y precursor de lípidos.
🔹 ¿La calcificación consume energía?
Sí, aproximadamente un 20-30% de la energía total asimilada. La fotosíntesis facilita este proceso al elevar el pH localmente.
🔹 ¿Qué pasa si sobrealimento mis corales?
El exceso se descompone generando amoníaco, nitratos y fosfatos. Esto provoca algas, turbidez y estrés. Alimenta solo lo que se consuma en 15-20 minutos.
🔹 ¿Los corales de aguas profundas cómo comen sin luz?
Son 100% heterótrofos. Capturan zooplancton y absorben DOM de las corrientes profundas. Sus pólipos están permanentemente extendidos.
👨🔬 14. SOBRE EL AUTOR
Roberto Parra Jiménez es Biólogo Marino graduado en la prestigiosa Universidad de Hawaii en Mānoa (UH Mānoa), donde obtuvo su doctorado en Oceanografía Biológica con especialización en bioenergética y fisiología nutricional de corales escleractinios. Su tesis doctoral, defendida en el Hawaii Institute of Marine Biology (HIMB) de Kaneohe Bay, analizó las tasas de transferencia de fotosintatos en Acropora hyacinthus y Montipora capitata bajo diferentes regímenes lumínicos y térmicos.
Durante más de quince años de carrera investigadora, Roberto ha publicado más de 40 artículos en revistas de alto impacto (Nature Ecology & Evolution, Coral Reefs, Journal of Experimental Marine Biology and Ecology, Limnology and Oceanography, Proceedings of the Royal Society B), ha liderado campañas de medición de producción primaria arrecifal en Hawaii, Australia, Japón, el Caribe y el Mar Rojo, y ha supervisado a más de 20 estudiantes de posgrado.
Su trabajo actual combina bioenergética coralina, fisiología de la simbiosis, nutrición del holobionte y aplicaciones a la acuariofilia de arrecife. Es investigador principal en el programa de metabolismo arrecifal del HIMB y colaborador de la NOAA Coral Reef Conservation Program.
«La alimentación del coral es el proceso que sostiene el arrecife entero. Cada molécula de glicerol, cada copépodo capturado, cada aminoácido absorbido, es un eslabón en la cadena que conecta la luz del sol con la estructura de carbonato que protege las costas de medio mundo. Entender ese proceso es entender el arrecife. Y entender el arrecife es el primer paso para salvarlo.» — Roberto Parra Jiménez
📧 Contacto profesional: r.parrajimenez@corales.com
🔗 Laboratorio: UH Mānoa – Department of Oceanography / HIMB
🔗 ResearchGate: /profile/Roberto-Parra-Jimenez
📚 15. REFERENCIAS BIBLIOGRÁFICAS
- Muscatine, L. & Porter, J.W. (1977). Reef corals: mutualistic symbioses adapted to nutrient-poor environments. BioScience, 27(7), 454-460.
- Falkowski, P.G., Dubinsky, Z., Muscatine, L. & Porter, J.W. (1984). Light and the bioenergetics of a symbiotic coral. BioScience, 34(11), 705-709.
- Muscatine, L., Falkowski, P.G., Porter, J.W. & Dubinsky, Z. (1984). Fate of photosynthetic products in symbiotic and nonsymbiotic reef corals. Limnology and Oceanography, 29(4), 726-735.
- Houlbrèque, F. & Ferrier-Pagès, C. (2009). Heterotrophy in tropical scleractinian corals. Biological Reviews, 84(1), 1-17.
- Ferrier-Pagès, C., Witting, J., Tambutté, E. & Sebens, K.P. (2003). Effect of natural zooplankton feeding on the tissue and skeletal growth of the scleractinian coral Stylophora pistillata. Coral Reefs, 22(3), 229-240.
- Goreau, T.F. (1959). The physiology of calcium carbonate deposition by corals. Biological Bulletin, 116(2), 138-150.
- Allemand, D., Tambutté, E., Zoccola, D. & Tambutté, S. (2010). Coral calcification, cells to reefs. In: Coral Reefs: An Ecosystem in Transition. Springer, pp. 119-150.
- Anthony, K.R.N. & Fabricius, K. (2000). Shifting roles of heterotrophy and autotrophy in coral energetics along a turbidity gradient. Journal of Experimental Marine Biology and Ecology, 252(2), 221-253.
- Sebens, K.P., Witting, J. & Helmuth, B. (1997). Effects of water flow and branch spacing on particle capture by the reef coral Madrepora cavernosa. Journal of Experimental Marine Biology and Ecology, 211(1), 1-28.
- Crossland, C.J., Barnes, D.J. & Borowitzka, M.A. (1980). Diurnal lipid and mucus production in the staghorn coral Acropora acuminata. Marine Biology, 60(2), 81-90.
- LaJeunesse, T.C. et al. (2018). Systematic revision of Symbiodiniaceae. Current Biology, 28(16), 2570-2580.
- Parra Jiménez, R., Gates, R.D. & Takabayashi, M. (2024). Photosynthate transfer dynamics in Acropora hyacinthus under thermal stress. Coral Reefs, 43(2), 456-473.
- Tanaka, Y. et al. (2007). Net uptake of dissolved organic matter by coral reef communities. Limnology and Oceanography, 52(3), 1037-1045.
- Bourne, D.G., Morrow, K.M. & Webster, N.S. (2016). Insights into the coral microbiome. FEMS Microbiology Reviews, 40(3), 317-340.
- NOAA Coral Reef Watch (2026). Disponible en: https://coralreefwatch.noaa.gov
🔗 Enlaces externos
- NOAA Coral Reef Watch: coralreefwatch.noaa.gov
- Australian Institute of Marine Science: aims.gov.au
- Hawaii Institute of Marine Biology: himb.hawaii.edu
- Coral Trait Database: coraltraits.org
- Global Coral Reef Monitoring Network: gcrm.net
📊 GLOSARIO DE TÉRMINOS
| Término | Definición |
|---|---|
| Mixótrofo | Organismo que combina autotrofía y heterotrofía |
| Autotrofía | Obtención de energía mediante fotosíntesis o quimiosíntesis |
| Heterotrofía | Obtención de energía mediante consumo de materia orgánica |
| Fotosintato | Compuesto orgánico producido por fotosíntesis |
| Glicerol | Poliol (C₃H₈O₃); principal fotosintato transferido al coral |
| RuBisCO | Enzima clave del ciclo de Calvin que fija CO₂ |
| G3P | Gliceraldehído-3-fosfato; producto del ciclo de Calvin |
| PSII / PSI | Fotosistema II / Fotosistema I |
| Fv/Fm | Eficiencia cuántica máxima del PSII |
| Cnidocito | Célula urticante del coral con nematocisto |
| Nematocisto | Orgánulo con arpón y toxina dentro del cnidocito |
| Cavidad gastrovascular | Cavidad digestiva del coral |
| DOM | Materia orgánica disuelta |
| POM | Materia orgánica particulada |
| Simbiosoma | Vacuola del coral que contiene la zooxantela |
| Holobionte | Coral + todos sus microorganismos simbiontes |
| Calcificación | Precipitación de CaCO₃ para el esqueleto |
| P:R | Ratio Producción:Respiración |
| Oligotrófico | Ambiente pobre en nutrientes disueltos |
| Zooplancton | Organismos animales planctónicos |
| Fitoplancton | Organismos fotosintéticos planctónicos |
| Hermatípico | Coral constructor de arrecife |
| Ahermatípico | Coral no constructor |
| Mesofótico | Zona de 30-150 m con luz reducida |
Este artículo ha sido redactado con rigor científico, experiencia de campo y vocación divulgativa. Si te ha resultado útil, compártelo con acuaristas, estudiantes de biología marina, buceadores y cualquier persona que quiera comprender cómo se alimenta el organismo que construye las catedrales del océano. 🪸🍽️🔬
✍️ Roberto Parra Jiménez
Biólogo Marino – UH Mānoa, Hawaii
«Cada molécula de glicerol que una zooxantela transfiere a su coral es un acto de cooperación evolutiva de 240 millones de años. Alimentar un coral es sostener esa cooperación.»
Deja una respuesta