Especialista en Ecología Acuática, Botánica Tropical y Acuariofilia
📋 ÍNDICE DEL ARTÍCULO
- 1. 🌏 INTRODUCCIÓN
- 2. 🧬 TAXONOMÍA Y CLASIFICACIÓN
- 3. 🗺️ ORIGEN Y HÁBITAT EN EL ARRECIFE
- 4. 🌿 MORFOLOGÍA Y CARACTERÍSTICAS
- 5. 💧 PARÁMETROS, ILUMINACIÓN Y FLUJO
- 6. 🪨 COLOCACIÓN, CRECIMIENTO Y FRAGGING
- 10. 💎 CONSEJOS DEL EXPERTO
1. 🌏 INTRODUCCIÓN
Lobophytum crassum von Marenzeller, 1886 es un octocoral alcionáceo de la familia Alcyoniidae, conocido en el hobby como «coral cuero de dedos gruesos» o devil’s hand leather. El epíteto específico —crassum, «grueso»— alude a la característica diagnóstica de la especie: un cenénquima excepcionalmente macizo del que emergen lóbulos digitiformes cortos, romos yde sección casi circular, no ramificados y sin la digitación laxa y alargada de L. pauciflorum. La colonia es dimórfica, con autozooides grandes y retráctiles (hasta 4–6 mm de diámetro del disco oral, con ocho tentáculos pinnados) y sifonozooides diminutos, no tentaculados, dispersos por la superficie, que bombean agua y mantienen la turgencia hidrostática del tejido.
La robustez del tejido no es casual: está reforzada por escleritos calcáreos de tamaño descomunal para el género, husos tuberculados que pueden superar los 3 mm de longitud en el interior del cenénquima, combinados con mazas (clavos) de cabeza verrugosa en la capa superficial. Al tacto, la colonia se percibe como goma densa con carga abrasiva; esa arquitectura escleral es la que permite a la especie colonizar pavimentos calcáreos batidos por el oleaje en crestas y planicies arrecifales someras. En el acuario, esa misma densidad explica su resistencia al manipuleo y su mala fama inversa: es un coral que aguanta mucho, pero que se defiende químicamente con agresividad.
L. crassum produce cembranólidos diterpénicos característicos, entre ellos el crassólido y el lobocrasol, ambos aislados de material de esta especie. Estos metabolitos ejercen alelopatía: inhiben el asentamiento y el crecimiento de competidores, incluidos corales pétreos, y le confieren actividad antifouling y citotóxica (de ahí su interés farmacológico). En un sistema cerrado, esto se traduce en un riesgo real de «guerra química» contra SPS vecinos: mantener una separación mínima de 10–15 cm respecto a acropóridos y montipóridos, y carbón activado en funcionamiento continuo, no es una precaución teórica. Un ejemplar estresado puede liberar mucus cargado de terpenos que provoca necrosis por contacto en corales sensibles en 24–72 horas.
Advertencia taxonómica relevante para el acuarista avanzado: el género Lobophytum es un «basurero» morfológico. La plasticidad fenotípica en función de luz y corriente hace que colonias de la misma cepa molecular aparezcan como especies distintas según el hábitat. Parte del material que circula en el comercio como L. crassum es en realidad L. depressum o L. salvati; la identificación fiable exige examen de escleritos al microscopio (forma, ornamentación y tamaño de mazas y husos), no una foto.
2. 🧬 TAXONOMÍA Y CLASIFICACIÓN
| Categoría | Clasificación |
|---|---|
| Reino | Animalia |
| Filo | Cnidaria |
| Clase | Anthozoa |
| Subclase | Octocorallia |
| Orden | Alcyonacea sensu lato / Malacalcyonacea (McFadden et al., 2022) |
| Familia | Alcyoniidae |
| Género | Lobophytum Marenzeller, 1886 |
| Especie | Lobophytum crassum von Marenzeller, 1886 |
| Autoridad y localidad tipo | von Marenzeller, 1886; aguas de Japón (región de Enoshima/Sagami) |
| Scleroma | Husos tuberculados de hasta 3–4 mm en el cenénquima; mazas verrugosas de 0,10–0,25 mm en la capa superficial; bastones pequeños en los tentáculos |
| Tipo colonial | Dimórfica (autozooides + sifonozooides), con lóbulos digitiformes gruesos |
| Simbiontes | Zooxantelas del género Cladocopium (clado C) mayoritariamente; mezclas con Durusdinium en hábitats someros y térmicamente variables |
La posición genérica se sostiene por caracteres esclerales y de arquitectura colonial: Alcyoniidae se distingue de Nephtheidae y Paralcyoniidae por la presencia de un cenénquima masivo persistente y polipos dimórficos, sin escleritos en forma de aguja fina. Dentro de Lobophytum, la serie de especies se ordena por la densidad y morfología de las mazas superficiales; L. crassum se separa por el contraste extremo entre mazas pequeñas y densas en superficie e husos enormes en el interior, junto con la relación anchura/longitud de los lóbulos (típicamente < 0,5, es decir, dedos cortos y gruesos). El nombre aceptado en WoRMS es Lobophytum crassum von Marenzeller, 1886; los registros antiguos bajo L. solidum y algunas citas de L. confertum del Indo-Pacífico occidental se consideran hoy sinonimias dudosas o mal aplicadas.
3. 🗺️ ORIGEN Y HÁBITAT EN EL ARRECIFE
Distribución Indo-Pacífica amplia: mar Rojo, África oriental, Madagascar, Seychelles, Maldivas, golfo de Bengala, archipiélago indo-malayo (foco de máxima diversidad), Filipinas, Indonesia, Palau, Micronesia, Gran Barrera de Coral y archipiélago de Ryukyu, alcanzando aproximadamente los 25–28° de latitud en ambos hemisferios. No aparece en el Atlántico ni en el Caribe.
Su nicho es marcadamente somero: planicies arrecifales internas, lagunas con parches de cascajo, cabezas de coral muerto en el back-reef y los primeros 5–8 m de la pendiente superior; el rango verificado va de 0 a ~20 m, con máxima abundancia entre 1 y 8 m. Tolera condiciones que eliminan a la mayoría de los hermatípicos: turbidez, sedimentación alta, fluctuaciones térmicas diarias de 3–5 °C en planicies expuestas en marea baja viva, y descensos puntuales de salinidad tras lluvias monzónicas. Es, por tanto, una especie de aguas «sucias» y variables, no de arrecife frontal oligotrófico. Se fija con un disco basal de cenénquima sobre pavimento calcáreo, cascajo consolidado o esqueleto de coral muerto, y las colonias de laguna forman a menudo parches clonales por fisión longitudinal.
En el arrecife cumple función de competidor espacio-céntrico: coloniza rápidamente sustrato libre y luego lo defiende por alelopatía más que por crecimiento, ya que su tasa de extensión es lenta (del orden de 1–3 cm lineales al año en condiciones naturales). La reproducción sexual es propia de gonocóricos con desove broadcast sincronizado con ciclos lunares (patrón de agregación reproductiva documentado en alcionáceos del Indo-Pacífico), con larvas planula de vida planctónica breve; la fidelidad al microhábitat de asentamiento es alta, lo que explica la estructura de parches.
Traslación práctica al acuario: procede de aguas con PAR estacional de 150–350 µmol·m⁻²·s⁻¹, temperatura media de 27–29 °C y alcalinidad estable. En cautividad rinde mejor con iluminación media (100–200 µmol·m⁻²·s⁻¹, fotoperiodo 10–12 h), flujo medio e indirecto (sin chorro laminar directo, que impide la expansión de los pólipos) y parámetros de arrecife mixto: 24–26 °C, densidad 1,025–1,026 (35 PSU), KH 7–9 dKH, NO₃ 2–10 mg/L y PO₄ < 0,10 mg/L. Su origen en planicie arrecifal explica por qué tolera nitratos altos y por qué, paradójicamente, se contrae y detiene el crecimiento en sistemas ULNS con NO₃ < 0,5 mg/L: en ese escenario requiere alimentación particulada suplementaria (rotíferos, nauplios de Artemia, fitoplancton concentrado de 5–30 µm), dado que la autotrofia por zooxantelas no cubre su demanda de nitrógeno.
4. 🌿 MORFOLOGÍA Y CARACTERÍSTICAS
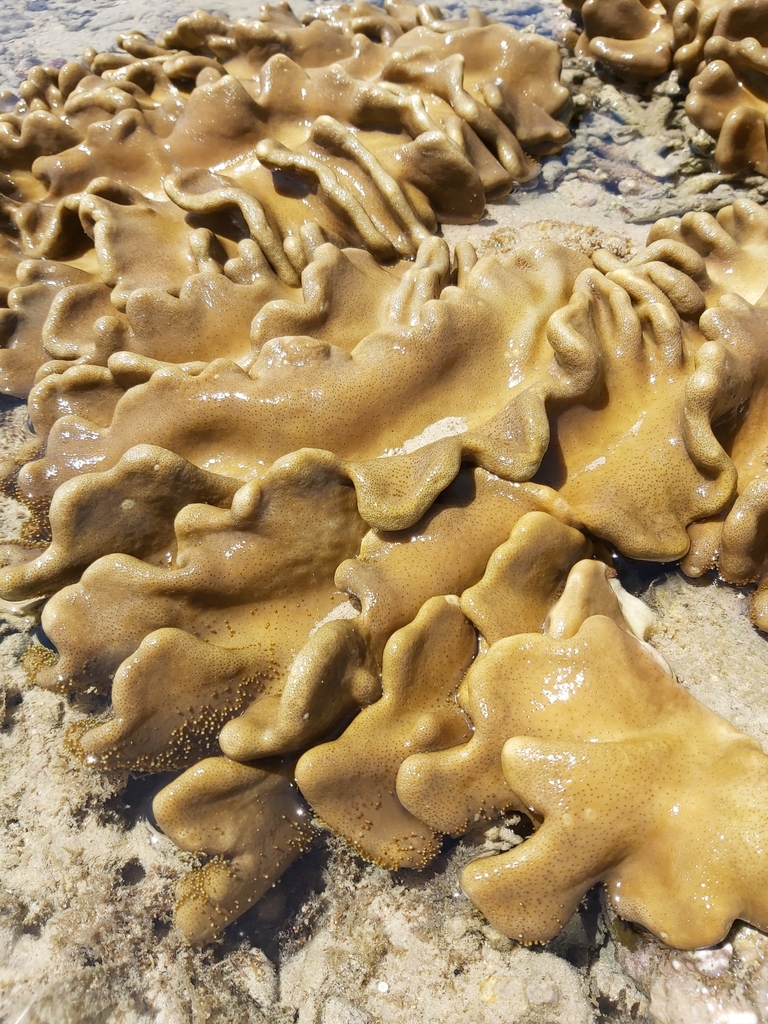
Lobophytum crassum (Ehrenberg, 1834) es un alcionáceo de la familia Alcyoniidae cuyo epíteto específico —crassum, «grueso»— describe con precisión su rasgo diagnóstico: un coenenquima desproporcionadamente espeso, de 2 a 5 cm de grosor, que da lugar a colonias masivas, hemisféricas o incrustantes, de consistencia carnosa y firme. A diferencia de L. pauciflorum, no desarrolla lóbulos digitiformes alargados; frente a L. strictum, carece de pie estipitado y de lóbulos capitados terminales. Su contorno es irregular, con crestas bajas y lóbulos romos, anchos y poco elevados, que en el arrecife natural alcanzan 20-40 cm de diámetro y en acuario rara vez superan los 25 cm si no se fragmenta.
La colonia es dimórfica, y este es el criterio de identificación práctica frente a Sinularia: presenta autozooides de 1-2 mm de diámetro con ocho tentáculos pinnados y retráctiles, y sifonozooides —pólipos sin tentáculos, de función exclusivamente hídrica— distribuidos en los surcos entre las crestas y sobre los lóbulos. Sinularia no posee sifonozooides; si al examinar la superficie con lupa se ven poros pequeños y contraídos entre los pólipos grandes, el género es Lobophytum. Los autozooides se retraen por completo en el coenenquima, sin tubos polipales individuales, lo que produce esa superficie lisa y «cerrada» típica cuando el coral está cerrado.
No existe esqueleto axial, pero sí un denso armazón de escleritos calcáreos de 0,1-0,6 mm: mazas (clubs) con cabeza espinosa y espículas fusiformes que confieren al tejido su textura de cuero y explican dos comportamientos observados en acuario. Primero, la resistencia al corte: un fragmento no se separa con los dedos, hay que cortar el coenenquima con filo. Segundo, la baja palatabilidad: peces ángel y cangrejos ermitaños rara vez lo dañan, aunque Chaetodon y algunos Pygoplites pueden mordisquear los pólipos sin consumir los escleritos.
Las zooxantelas son Symbiodinium del clado C (C1 y C3 mayoritarios), con densidad elevada por unidad de tejido; aportan más del 80 % del carbono de la colonia en condiciones de luz adecuada, de modo que el coral no requiere alimentación particulada para mantenerse, aunque sí la aprovecha. L. crassum acumula además aminoácidos tipo micosporina (MAAs), lo que le permite tolerar UV alto sin decolorarse tanto como otros blandos. Fotoquímicamente es arremolinado y de defensa química potente: produce diterpenos cembranólidos —crassolide, lobolide y derivados hidroxilados— que libera en el mucus y que inhiben el crecimiento de corales pétreos competidores. En el arrecife esto genera halos de exclusión de 5-15 cm alrededor de la colonia; en el acuario se traduce en una agresividad química real y sostenida, no puntual.
La coloración es sobria: crema, beige, marrón amarillento u oliva, con pólipos más pálidos, blanquecinos o verde claro. No presenta fluorescencia relevante; bajo luz actínica apenas gana color, y cualquier tono rosa o verde intenso debe hacer sospechar una identificación errónea. La superficie se cubre periódicamente de una cutícula mucosa blanquecina que se desprende en sábanas cada 3-6 semanas; es fisiológico, no una enfermedad.
5. 💧 PARÁMETROS, ILUMINACIÓN Y FLUJO
Es una especie tolerante y de rango amplio, lo que la hace habitual en acuarios de iniciación, pero eso no significa que sea indiferente: crece, se expande y colora bien solo en la franja media-alta de cada parámetro. Tolera nitratos altos mucho mejor que la mayoría de los pétreos, y de hecho los agradece.
| Parámetro | Rango óptimo | Tolerancia / observaciones |
|---|---|---|
| Temperatura | 24-26 °C | Soporta 22-28 °C; por encima de 28,5 °C se detiene la expansión polipal y aparece blanqueamiento del coenenquima |
| Salinidad | 1.024-1.026 (35 g/L) | Estable; variaciones de más de 0,002 en 24 h provocan cierre prolongado y secreción de mucus |
| pH | 8,0-8,3 | Acepta 7,8-8,4; no requiere estabilidad extrema |
| KH (alcalinidad) | 8-9 dKH | Rango 7-11 dKH; consume alcalinidad por calcificación de escleritos, aunque poco |
| Calcio | 400-450 mg/L | Suficiente con 400; los escleritos son la única demanda de Ca |
| Magnesio | 1.300-1.350 mg/L | Rango 1.250-1.400 mg/L |
| Nitratos (NO₃) | 2-10 mg/L | Tolera 20-30 mg/L sin daño; por debajo de 1 mg/L se decolora y adelgaza el coenenquima |
| Fosfatos (PO₄) | 0,03-0,10 mg/L | Admite 0,15 mg/L; fosfato a cero no es recomendable en esta especie |
| Iluminación | PAR 100-200 µmol·m⁻²·s⁻¹ (media) | LED de 4-6 h de pico; a más de 300 µmol·m⁻²·s⁻¹ se retrae y palidece |
| Flujo | Moderado, indirecto y turbulento (10-20 cm/s) | Debe mover los pólipos sin aplastarlos; flujo laminar directo e intenso impide la expansión |
La clave práctica es la relación luz-nutrientes: con nitrato bajo y luz alta se blanquea en dos semanas; con nutrientes medios y luz media, mantiene el beige denso y crece. El flujo debe ser aleatorio: una bomba dirigida frontalmente contra la colonia la mantiene cerrada de forma crónica, mientras que el flujo cruzado e intermitente favorece la expansión nocturna y diurna. Mantén el yodo en 0,04-0,06 mg/L si haces cambios de agua regulares; esta especie responde mal a las bajadas bruscas de yodo tras fragmentación.
6. 🪨 COLOCACIÓN, CRECIMIENTO Y FRAGGING
Colocación. Fíjala a roca viva firme, nunca sobre arena: la base del coenenquima se necrosa enterrada. Elige una roca aislada, tipo «bommie» pequeño, que permita crecer sin tocar pétreos. Respeta 15-20 cm de separación de cualquier Acropora, Montipora o Seriatopora: los cembranólidos que exuda son citotóxicos y frenan activamente su crecimiento, y un contacto directo permite además el sobrecrecimiento físico del blando, que acaba cubriendo al pétreo. Colócala en la mitad inferior o media del acuario, sin sombra total pero sin pico de 400 µmol·m⁻²·s⁻¹; si vienes de una zona de baja luz, haz la aclimatación lumínica en 2-3 semanas subiendo la colonia 5 cm cada vez. La orientación ideal deja la cara superior libre y lateralmente expuesta a la corriente.
Crecimiento. En condiciones medias, L. crassum crece por extensión radial del coenenquima a razón de 1-2 cm al mes; es un crecimiento incrustante y voluminoso más que ramificado, con lo que aumenta sobre todo en grosor. Mide el diámetro cada mes: es un buen indicador de que los nutrientes y el flujo están en rango. Se reproduce vegetativamente en acuario por fisión del lóbulo basal, que se desprende y se fija en la roca vecina; si aparecen colonias jóvenes no introducidas, esa es la causa, no una espora.
Fragging. Es una de las especies más sencillas de fragmentar. Extrae la colonia madre, corta un fragmento de 3-5 cm con bisturí desechable o sierra de coral, atravesando el coenenquima de un solo corte: un corte a medias deja tejido desgarrado que se necrosa. Incluye una porción de la base, donde la densidad de escleritos es mayor, porque ese fragmento fija mucho antes. El fragmento supura mucus denso y compuestos terpénicos: enjuáguelo en un recipiente aparte con agua del acuario, no lo devuelva al sistema sin escurrirlo, y ponga carbón activado 48-72 h tras cada sesión de corte. Desinfecta el corte en una disolución de yodo (Lugol, 5-10 gotas por litro, 3-5 minutos) y pégalo con cianoacrilato gel sobre un fragmento de roca. Seca la base del coral con una servilleta antes de aplicar el pegamento: sobre mucus, el cianoacrilato no agarra.
Los fragmentos curados se colocan en una zona de flujo moderado y luz baja durante 5-7 días, y el tiempo de cicatrización total es de 10-14 días; el primer mes no los muevas. Deja siempre al menos el 50 % de la colonia madre intacta si quieres volver a cortar en seis meses. No fragmentes justo después de un cambio de salin
10. 💎 CONSEJOS DEL EXPERTO
En Lobophytum crassum casi todos los errores se cometen en las dos primeras semanas: mal ubicada, mal sujetada o malinterpretando su fisiología. Estos son los puntos que deciden si la colonia prospera o se convierte en un problema de espacio y de química.
- Distinga sifonozoos de tejido necrótico. La especie es dimórfica: los autozoos tienen ocho tentáculos pinnados y los sifonozoos carecen de ellos y solo bombean agua. Cuando la colonia se retrae, la superficie lobulada aparece lisa pero con poros activos; eso es normal. Solo hay alarma si ve brillo vítreo, hilos de tejido desprendido o coenenquima desnudo: esta especie no tiene esqueleto calcáreo, únicamente escleritos internos en forma de maza y espícula.
- Fijación sin retorno. A diferencia de Sarcophyton, no forma estípite: la base se expande sobre la roca y se ancla con los escleritos clavados. Una vez asentada, desprenderla exige cortar roca. Colóquela sobre una roca aislada, en el tercio medio-superior, con 12-15 cm libres alrededor.
- Guerra química cuantificada. Libera cembranólidos diterpénicos (lobophytolide, crassolide) de acción alelopática y citotóxica. En 200 L mantenga 200-300 g de carbón activado, renovado cada 3-4 semanas. En acuarios mixtos con Acropora o Montipora jóvenes, ni la distancia ni el carbón son opcionales.
- Fragmente cortando coenenquima, no lóbulos. Navaja o tijera bien afilada: los escleritos embotan el filo. Corte limpio en una sola pasada y fragmento de 4-6 cm con dos lóbulos al menos. Sujeción con goma elástica flácida sobre roca rugosa; una goma tensa estrangula y necrosa el injerto en 48 h.
- La muda de mucus no se trata. Cada 3-6 semanas la colonia se cierra entre 3 y 7 días y desprende una capa de mucus con detrito y epibiontes. No la mueva, no la bañe en yodo, no la someta a dip. Suba circulación y carbón, y espere.
- Circulación turbulenta, nunca laminar. 15-25 recambios por hora con flujo alternante. Un chorro directo y constante sobre los lóbulos provoca retracción permanente y necrosis en la base por acumulación de mucus.
- No confunda falta de color con exceso de luz. Mantiene tonos marrón, verdoso o beige con PAR de 150-300 µmol/m²/s; por debajo de 100 µmol/m²/s el crecimiento cae por debajo de 0,5 cm/mes aunque el color se conserve. Si palidece con luz alta, revise nutrientes antes de bajar la intensidad.
- Suelo de nutrientes, no cero. NO₃ entre 5 y 15 mg/L y PO₄ entre 0,03 y 0,10 mg/L.
🔎 ANÁLISIS AVANZADO: CASOS Y AJUSTES FINOS
Lobophytum crassum perdona más que un SPS, pero su tolerancia no es infinita y su grado de expansión polípica es el mejor bioindicador disponible. Mantén salinidad entre 34,5 y 35,0 ppt (refractómetro calibrado a 25 °C), temperatura de 25 ± 1 °C —por encima de 28,5 °C aparecen retracción y blanqueamiento en 48-72 h—, alcalinidad de 7,5-9,0 dKH y pH 8,1-8,4. Soporta nitrato de 5-15 mg/L y fosfato de 0,05-0,15 mg/L sin perder color, porque es mixótrofo y aprovecha la materia orgánica disuelta. La estabilidad importa más que el valor absoluto: oscilaciones superiores a 1 dKH en 24 h provocan contracción y frenan el crecimiento. Sobre el yodo: la asociación con la expansión polípica es un lugar común de foro sin respaldo experimental; la expansión depende de flujo, DOC y disponibilidad de presas, no de yoduro. Añadir Lugol para «abrir pólipos» solo enmascara un problema de flujo. Calcio y magnesio (420-450 y 1300-1350 mg/L) son irrelevantes para su esqueleto —carece de él— pero condicionan la química del agua que comparte con los pétreos.
Es un competidor químico agresivo. Lobophytum crassum produce diterpenos cembranoides —lobocrasol y crassumolida entre otros— que libera en el mucus y que inhiben el crecimiento y provocan retracción de pólipos en Acropora y Montipora situadas hasta 30-40 cm aguas abajo. La liberación se dispara con el estrés: corte, fragmentación, manipulación fuera del agua, subida térmica o densidad alta de octocorales. Un fragmento recién cortado en 200 L puede mantener niveles detectables de terpenos durante días. El skimmer retira parte, pero estos compuestos son hidrófobos y poco volátiles; el carbón activo en reactor (0,5-1 g/L, renovado cada 3-4 semanas) es la herramienta realmente eficaz, complementada con cambios de agua del 10-15 %. Coloca la colonia por debajo y a favor de corriente de los SPS, nunca por encima ni en el mismo ramal de retorno. Si detectas rechazo de pólipos en corales vecinos sin causa aparente, revisa primero el octocoral, no los parámetros.
Rango útil de 50-150 µmol/m²/s de PAR, con aclimatación posible hasta 250; por encima aparecen pólipos cerrados, palidez y una película cerosa brillante que es respuesta de estrés, no muda normal. Cualquier cambio de iluminación debe hacerse al 10-15 % semanal: pasar de 100 a 250 µmol/m²/s en tres días cierra la colonia durante una semana y, en ejemplares pequeños, puede desencadenar expulsión de zooxantelas. El flujo es más determinante que la luz: necesita movimiento turbulento y aleatorio de 15-25 cm/s en la superficie de la colonia (10-20 renovaciones/hora en el sistema). Una bomba dirigida directamente erosiona el borde de ataque y mantiene los pólipos cerrados; un flujo insuficiente acumula mucus y detritus en la base y abre la puerta a necrosis bacteriana. La expansión máxima se da con flujo intermitente —rampa o modo aleatorio—, no con corriente constante. Aprovecha esos momentos para alimentar con bacterioplancton, fitoplancton de 5-20 µm y particulado fino; captura presas pequeñas, no artemia adulta.
Los fallos poco frecuentes suelen ser mecánicos o bacterianos. La necrosis basal por detritus acumulado bajo el pie de la colonia es el más habitual: empieza como una banda blanquecina sin
🔎 ANÁLISIS AVANZADO: CASOS Y AJUSTES FINOS
Acoplamiento a parámetros. Lobophytum crassum es un alcionáceo con escleritos calcáreos dispersos que representan solo un 2–5 % del peso seco, de modo que su demanda de calcio y alcalinidad es real pero modesta: mantén Ca 410–450 mg/L, Mg 1280–1350 mg/L y KH 7,5–9 dKH. Tolera nitrato 5–20 mg/L y fosfato 0,05–0,20 mg/L sin necrosis, pero por encima de esos umbrales la densidad de zooxantelas se dispara, el tejido vira a pardo-verdoso y se vuelve friable al manipularlo. El factor crítico no es el valor absoluto sino la velocidad de cambio: oscilaciones superiores a 1,0 dKH o 2 °C en 24 h provocan retracción de pólipos y producción masiva de moco antes que cualquier patología detectable. Salinidad 34,5–35,5 ppt y temperatura 25–27 °C. Es un consumidor neto de yodo: en sistemas con skimmer agresivo y carbón permanente aparecen colonias con pólipos truncados y lobulaciones aplanadas que revierten con yoduro potásico a 0,03–0,06 mg/L de I semanal.
Competencia química. Su arma principal es la alelopatía. L. crassum sintetiza diterpenos de tipo lobano y cembranoide con actividad antiincrustante y citotóxica documentada; en acuario esto se traduce en una zona de inhibición de 10–20 cm donde Acropora, Montipora y Seriatopora muestran bandas necróticas ascendentes y cese del crecimiento. La agresión es asimétrica y se amplifica con el estrés: una colonia fragmentada o recién trasladada libera más terpenos durante 48–72 h, por lo que las podas deben hacerse fuera del sistema o con carbón activo funcionando (150–200 mL por 100 L, recambio semanal). El carbón y el ozono son la única mitigación eficaz; los filtros biológicos no degradan cembranoides. Frente a otros blandos la jerarquía es menos nítida y con Sinularia flexibilis o Sarcophyton spp. el resultado habitual es una franja de tejido pálido en ambos contendientes. Nunca lo sitúes a sotavento de una bomba que dirija el efluente hacia corales duros: el vector acuoso transporta los metabolitos.
Respuesta a luz y flujo. La aclimatación luminosa es lenta: 3–4 semanas para reajustar densidad de zooxantelas y clorofila a por célula. En PAR 100–250 µmol·m⁻²·s⁻¹ mantiene pólipos extendidos y lobulaciones turgentes; por encima de 350 µmol se retrae durante el fotoperiodo, segrega moco y los lobos se afinan hasta confundirse con Sinularia. Por debajo de 60 µmol sobrevive, pero pierde relieve escleral, se aplana y detiene el crecimiento. Ante un cambio brusco de luz la respuesta es inmediata (retracción) y la de color tarda semanas: un aclaramiento parcial con pólipos abiertos suele ser fotoinhibición reversible, no blanqueamiento patológico. En flujo exige 10–20 renovaciones/hora con componente turbulento y alternante; una corriente laminar directa superior a 25–30 cm/s cierra los pólipos de forma sostenida. Sin flujo suficiente el moco se acumula sobre el disco y aparecen colonias bacterianas blanquecinas en la base en 5–7 días. La mejor señal de acoplamiento correcto es la alternancia diaria entre expansión máxima y retracción nocturna.
Problemas poco frecuentes. (1) Necrosis séptica de base, con tejido que se desprende en jirones pardos, casi siempre tras un pico térmico >29 °C o una herida por manipulación: corta 1 cm por encima del margen sano, baño de yodo (10 mg/L, 10 min) y carbón activo. (2) Autotomía de lobos: la colonia suelta proyecciones que se adhieren y generan clones; no es enfermedad, pero indica estrés por flujo o competencia. (3) Bail-out de pólipos con tejido que se desprende dejando escleritos desnudos:
🔎 ANÁLISIS AVANZADO: CASOS Y AJUSTES FINOS
Lobophytum crassum procede de lagunas someras y planicies arrecifales internas del Indo-Pacífico, con agua a menudo turbia y oscilación térmica diaria; su acoplamiento ideal no es el de un SPS de arrecife exterior. Fija la alcalinidad en 7,5–8,5 dKH con deriva máxima de 0,3 dKH/día (más determinante que el valor absoluto), calcio 420–440 mg/L, magnesio 1290–1320 mg/L y salinidad 35 g/L medidos con refractómetro calibrado. Tolera nitrato 5–15 mg/L y fosfato 0,08–0,15 mg/L; por debajo de NO₃ 1 mg/L y PO₄ 0,03 mg/L adelgaza el cenénquima, reduce la expansión de pólipos y la colonia palidece sin blanquear del todo. Mantén 25–26 °C y evita superar 28 °C, porque ese salto suele desencadenar el desprendimiento masivo de la capa mucosa y, con él, un pico de amonio por descomposición. En sistemas muy oligotróficos aporta aminoácidos o particulado de 50–200 µm dos veces por semana: captura poco, pero compensa una fotosíntesis limitada por nutrientes.
Químicamente es un competidor agresivo: sintetiza diterpenos cembranoides —crassolida y derivados del lobofitolido— que libera al agua y que inhiben el crecimiento y provocan necrosis en corales duros. En la práctica, una colonia de 15 cm situada 10 cm aguas abajo de una rama de Acropora puede inducir necrosis desde la base en 48–72 h sin contacto físico. La dirección de la corriente decide la gravedad del daño: colócalo a favor de flujo respecto a las salidas o, mejor aún, en un ramal hidráulico distinto. El carbón activado es obligatorio en sistemas mixtos: 200–300 mL por 100 L, cambiado cada 3–4 semanas y aclarado en agua de ósmosis, contiene la carga de terpenos sin empobrecer el medio. Vigila el sobredimensionado, porque retira también yodo y compuestos orgánicos que el coral aprovecha. Frente a Sinularia y Sarcophyton la competencia es más solapada: crecimiento detenido en la línea de contacto y expansión de lóbulos para ocupar el sustrato.
Sus zooxantelas (Cladocopium, clado C) le confieren un intervalo fotosintético amplio, pero la aclimatación es lenta: 3–4 semanas por escalón de intensidad. Entre 100 y 180 µmol·m⁻²·s⁻¹ se mantiene expandido y con pólipos largos; entre 200 y 300 µmol·m⁻²·s⁻¹ se adapta oscureciendo el tejido, sin que sea deseable. Señales de exceso: pólipos retraídos de forma persistente con lóbulos aún turgentes, bordes pálidos y acortamiento del pólipo. Señales de defecto: lóbulos aplanados, tallo estirado hacia la luz y color pardo apagado. En flujo exige 15–20 renovaciones/hora con patrón alternante o pulsátil; el flujo laminar directo erosiona el cenénquima en la cara expuesta y abre lesiones que se infectan. La corriente es además su sistema de limpieza: cada 7–14 días muda una capa de mucus con detritos y necesita arrastre para evacuarla. Sin él, la capa queda retenida sobre los lóbulos y se produce necrosis anaerobia bajo el moco.
Problemas poco frecuentes. Primero, la pudrición del disco basal cuando el fragmento se entierra en arena o se fija con epoxi cubriendo el corte: el tejido muere por anoxia en 5–10 días y la necrosis asciende por el tallo. Fija siempre la roca en una oquedad, con el corte en contacto con agua libre, y usa nailon o cianocrilato solo en el punto mínimo. Segundo, el colapso del espumador: el mucus recién liberado tiene actividad surfactante y puede desbordar el vaso en minutos tras una manipulación; déjalo en modo húmedo dos horas y reajusta después. Tercero, infestaciones por planarias del género Waminoa, acumuladas en la superficie dorsal y
Especialista en Ecología Acuática, Botánica Tropical y Acuariofilia
© 2026 Roberto Parra Jiménez – Biólogo Marino (UH Mānoa). Todos los derechos reservados.
Deja una respuesta