Especialista en Ecología Acuática, Botánica Tropical y Acuariofilia
📋 ÍNDICE DEL ARTÍCULO
- 1. 🌏 INTRODUCCIÓN
- 2. 🧬 TAXONOMÍA Y CLASIFICACIÓN
- 3. 🗺️ ORIGEN Y HÁBITAT EN EL ARRECIFE
- 4. 🌿 MORFOLOGÍA Y CARACTERÍSTICAS
- 5. 💧 PARÁMETROS, ILUMINACIÓN Y FLUJO
- 6. 🪨 COLOCACIÓN, CRECIMIENTO Y FRAGGING
- 7. 🤝 COMPATIBILIDAD CON PECES E INVERTEBRADOS
- 10. 💎 CONSEJOS DEL EXPERTO
- 11. 📅 CALENDARIO DE CUIDADOS
- 12. ✅ CONCLUSIÓN
1. 🌏 INTRODUCCIÓN
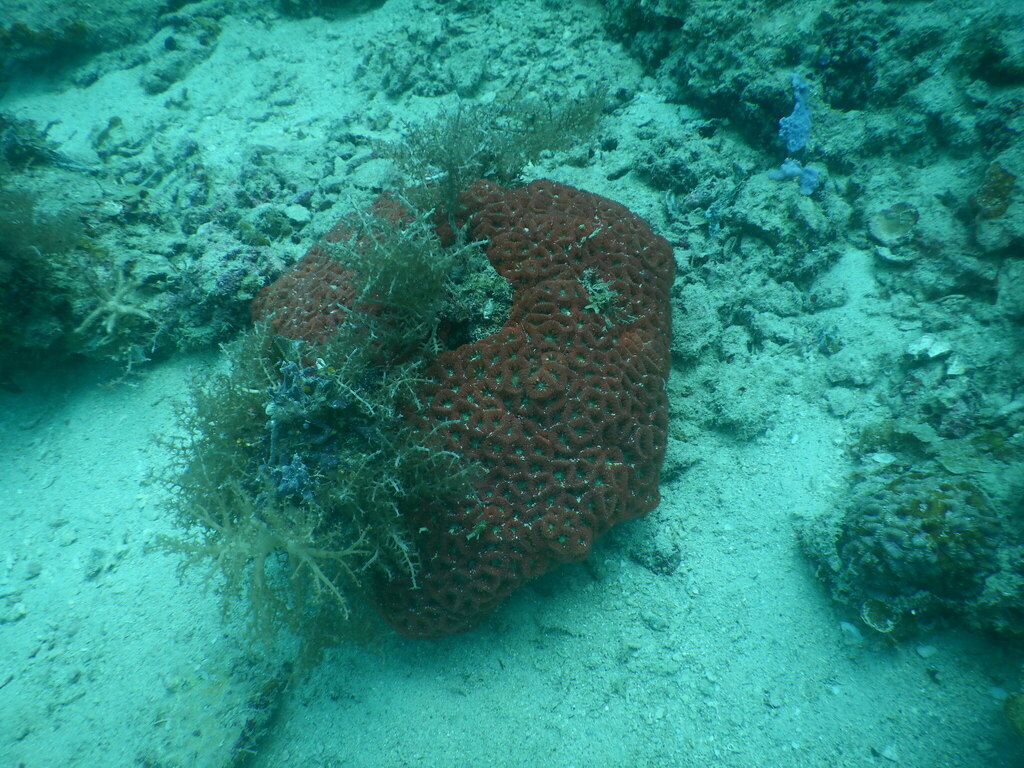
Blastomussa merleti (Wells, 1961) es un escleractinio colonial de morfología estrictamente faceloide: cada coralito se asienta sobre su propia rama, generada por gemación extratentacular, con ramas de 4-8 mm de grosor y hasta 40-60 mm de longitud que suelen fusionarse en la base formando racimos compactos de 20-40 coralitos. Los cálices miden 3-6 mm de diámetro (excepcionalmente 7 mm), con 8-12 septos delicados dispuestos en dos ciclos, costas apenas marcadas y un esqueleto poroso y ligero, muy distinto del esqueleto masivo y denso de su congénere B. wellsi. El tejido carnoso es translúcido, retráctil y lento, y el pólipo carece de tentáculos largos capturadores: la captura de presas se realiza por adhesión de mucus sobre la superficie oral.
La coloración es uno de sus grandes atractivos y muy variable: mantos granate, rojo vino, violeta, azul acero o marrón chocolate, con el disco oral contrastado en verde, amarillo, ocre o naranja y fluorescencia verde bajo actinicos. Existen morfos casi monocolores (verde oliva, naranja pálido) y morfos bicolores de alto contraste; la pigmentación depende en parte de la exposición lumínica y del aporte de nutrientes, y las colonias mantenidas con PAR muy bajo tienden a oscurecer el manto y a reducir el contraste del centro bucal.
La confusión comercial con Blastomussa wellsi es sistemática y conviene resolverla antes de comprar: B. wellsi presenta coralitos de 8-14 mm, septos gruesos y dentados, y colonias que tienden a la forma cerioide con cálices parcialmente fusionados sobre una base masiva; B. merleti mantiene ramas separadas y digitiformes, pólipos pequeños y septos finos. En la práctica, casi todo lo que se vende como «Blastomussa de pólipo pequeño» o «Blasto branching» es B. merleti.
Su reputación de coral «fácil» está justificada, pero con matices: tolera PAR bajo (50-150 µmol/m²/s), acepta niveles de nutrientes moderados-altos (NO₃ 5-15 mg/L, PO₄ 0,03-0,10 mg/L) y sobrevive largos periodos sin alimentación directa gracias a sus zooxantelas. Sin embargo, su crecimiento es lento —del orden de pocos milímetros lineales por rama y año—, por lo que una colonia de 8-10 cm representa varios años de crecimiento y no debe someterse a traslados o fragmentaciones frecuentes. Tolera mal la competencia por espacio: es un coral de perfil bajo que pierde frente a Montipora, zoantídeos o algas filamentosas si se le deja en una zona de crecimiento activo.
2. 🧬 TAXONOMÍA Y CLASIFICACIÓN
| Categoría | Clasificación |
|---|---|
| Reino | Animalia |
| Filo | Cnidaria |
| Clase | Anthozoa |
| Subclase | Hexacorallia |
| Orden | Scleractinia |
| Familia | Lobophylliidae (clásicamente Mussidae; WoRMS: Scleractinia incertae sedis) |
| Género | Blastomussa Wells, 1961 |
| Especie | Blastomussa merleti (Wells, 1961) |
| Sinónimos / combinaciones | Blastomussa (Blastomussa) merleti Wells, 1961 |
| Morfología colonial | Faceloide, ramas digitiformes, gemación extratentacular |
| Coralitos | 3-6 mm de diámetro; 8-12 septos en dos ciclos |
| Simbiosis | Zooxantelada (Symbiodiniaceae), con heterotrofia relevante |
La posición familiar del género ha oscilado: la sistemática clásica basada en micromorfología del esqueleto lo situó en Mussidae, mientras que los análisis moleculares recientes lo apartan de ese clado y lo aproximan a Lobophylliidae, sin resolución definitiva; de ahí que WoRMS mantenga el género como incertae sedis dentro de Scleractinia. Para el acuarista esto no cambia nada zootécnico, pero sí explica por qué B. merleti responde de forma distinta a los «LPS clásicos» de Mussidae: es más tolerante a la baja luz y mucho menos agresivo a nivel de tentáculos digestivos.
Dentro del género, las tres especies habituales en el comercio se separan por tamaño y arquitectura del coralito: B. merleti (3-6 mm, faceloide laxo), B. wellsi (8-14 mm, tendencia cerioide) y B. welsoni (colonias submasivas con cálices de 5-9 mm).
3. 🗺️ ORIGEN Y HÁBITAT EN EL ARRECIFE
Su distribución abarca el Indo-Pacífico central y occidental: archipiélago indomalayo (Indonesia, con poblaciones densas en Célebes, Raja Ampat y las islas Milne), Filipinas, Malasia, Tailandia, Vietnam, Papua Nueva Guinea, islas Salomón, Palau y la Gran Barrera de Coral australiana. Es una especie de aguas cálidas y someras, registrada entre 0 y 25 m, con máxima abundancia entre 5 y 20 m.
El microhábitat es lo que define su manejo en acuario: B. merleti ocupa sustratos verticales, cornisas sombreadas, entradas de cuevas, techos de galerías y paredes de arrecifes lagunares con cierta turbidez y sedimentación. Rara vez aparece en crestas expuestas o en planos superiores iluminados donde dominan Acropora y corales masivos. Las poblaciones más vigorosas se observan en entornos con renovación de agua moderada pero constante, elevada carga orgánica disuelta y comunidades dominadas por esponjas, ascidias y corales azooxantelados accesorios, indicativo de un ambiente con aporte continuo de plancton y materia particulada.
En términos de parámetros in situ: temperatura superficial media de 26-29 °C, salinidad 34-35, y visibilidad frecuentemente reducida (5-15 m) por resuspensión de sedimento fino. Esta combinación explica su tolerancia en cautividad a nitrato y fosfato moderados-altos y su mala respuesta a sistemas ultralimpios con SPS: en acuarios con NO₃ por debajo de 1 mg/L y PO₄ indetectable, las colonias se retraen, pierden color y muestran crecimiento prácticamente nulo. El rango práctico recomendado es temperatura 24-27 °C, salinidad 34-35, dKH 7-9, Ca 400-450 mg/L y Mg 1250-1350 mg/L.
El flujo en el arrecife que ocupa nunca es de rompiente: se trata de corriente indirecta, suave y laminar, sin impacto frontal sobre el tejido. En el acuario esto se traduce en 5-10 renovaciones por hora indirectas, con el coral situado a sotavento de la bomba. Un flujo fuerte y directo no desgarra el tejido —el pólipo es carnoso y resistente—, pero impide la extensión del disco oral durante horas y, a medio plazo, reduce la captura de partículas y el crecimiento.
Su posición en la zonación competitiva del arrecife es periférica: coloniza huecos y sustratos crípticos, crece en vertical y evita el contacto directo con corales de crecimiento rápido. Esa misma estrategia la hace ideal para zonas sombreadas del acuario —bajo repisas, junto a la base de la roca, en el tercio inferior del tanque— donde otros LPS no prosperarían.
4. 🌿 MORFOLOGÍA Y CARACTERÍSTICAS
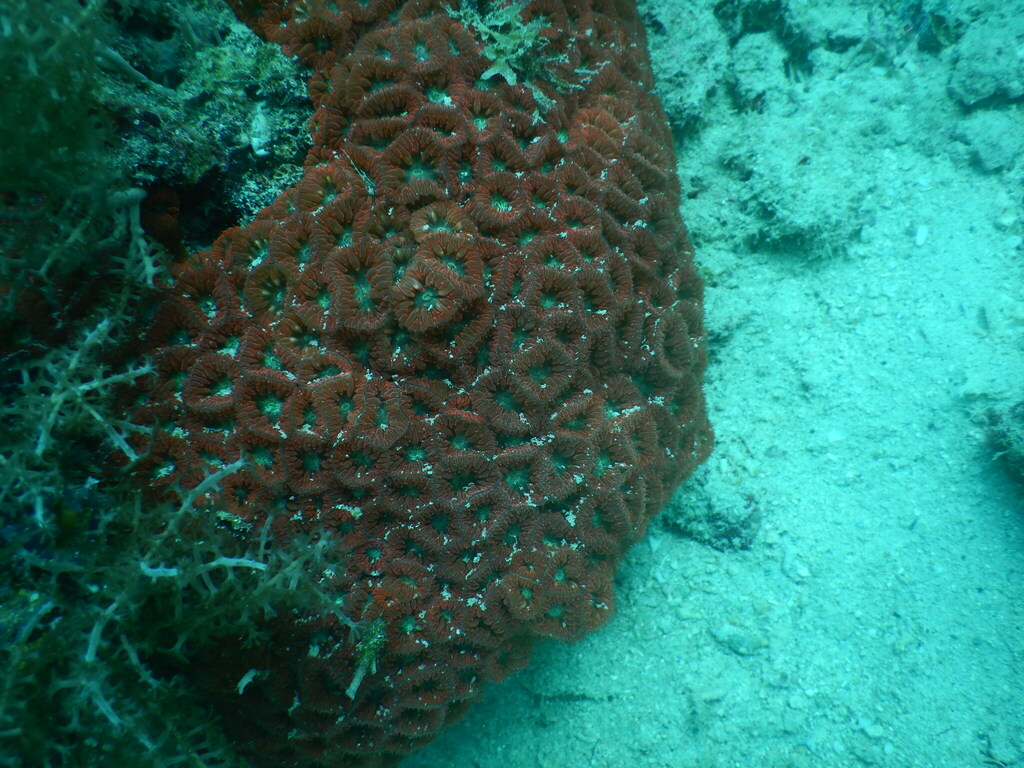
Blastomussa merleti (Wells, 1961) es un LPS de la familia Lobophylliidae (antes Mussidae), conocido en el comercio como «coral piña» o «blastomussa de pólipos pequeños». La confusión con B. wellsi es constante: merleti presenta pólipos de 3-8 mm de diámetro (rara vez 10 mm) frente a los 15-25 mm, carnosos y con septos muy desarrollados, de wellsi; además, merleti forma colonias con muchos más pólipos por cm² y de aspecto más «agrupado» que masivo.
La colonia es faceloide: corallites cilíndricos, alargados y separados entre sí, unidos solo por una base común estrecha, lo que da ese perfil de «racimo de tubos» o de piña. La gemación es extratentacular, es decir, las yemas nacen de la pared lateral del corallite parental, no del disco oral, de modo que la colonia crece ensanchándose por la base. Las paredes del corallite son finas, porosas y sorprendentemente frágiles para un LPS: se fracturan con una presión manual moderada. Los septos están poco desarrollados, en dos ciclos, con dientes septales romos y escasos, y el pólipo queda hundido en la copa; retraído, el conjunto ofrece una textura granulosa muy característica. En cautividad, las colonias rara vez superan los 10-15 cm, y el crecimiento se produce por adición de corallites nuevos más que por expansión de los existentes.
La coloración es variable y muy dependiente de la luz: rojo vino, naranja-rojizo, verde botella, turquesa e incluso marrones oscuros, casi siempre con el disco oral contrastado (frecuentemente verde o verdoso-amarillento) y un anillo de tejido más pálido en el borde del pólipo. Con iluminación intensa el color se apaga y el tejido se vuelve translúcido; con luz baja y alimentación regular, los colores se saturan. Los tentáculos son cortos, romos y poco numerosos, y se despliegan sobre todo de noche o tras la adición de alimento; un pólipo completamente expandido puede alcanzar 1,5 veces el diámetro del esqueleto.
Es un coral zooxantelado pero con una capacidad heterótrofa muy superior a la media de los LPS: en la naturaleza habita fondos de 10-30 m, bajo cornisas y en zonas turbias, por lo que sus zooxantelas están adaptadas a la penumbra y su umbral de fotoinhibición es bajo. Captura presas pequeñas (0,5-2 mm) con los tentáculos y, si el alimento es mayor, everte filamentos mesentéricos. Esta mixotrofia explica que colonias mantenidas con luz escasa pero alimentadas con frecuencia crezcan y mantengan color, mientras que colonias muy iluminadas y sin alimentar se degradan en semanas.
5. 💧 PARÁMETROS, ILUMINACIÓN Y FLUJO
La especie tolera rangos amplios, pero es mucho más sensible a la inestabilidad que a los valores absolutos: oscilaciones de KH superiores a 0,7 dKH en 24 h o caídas de salinidad por reposición descuidada producen retracción persistente y necrosis del borde del pólipo.
| Parámetro | Rango objetivo | Observaciones |
|---|---|---|
| Temperatura | 24-26 °C | Tolera 23-27 °C; por encima de 28 °C se produce expulsión de zooxantelas |
| Salinidad | 34-35 ppt (1,025-1,026) | Medir con refractómetro calibrado; evitar bajadas por agua de reposición |
| pH | 8,1-8,4 | Estable; el pH bajo crónico frena la calcificación de corallites tan finos |
| KH (alcalinidad) | 7-9 dKH | ±0,5 dKH/día como máximo; por encima de 11 dKH aparece necrosis en combinación con luz alta |
| Calcio | 420-450 mg/L | Suficiente con 420; no requiere niveles elevados |
| Magnesio | 1320-1380 mg/L | Por debajo de 1250 mg/L se desestabiliza el KH |
| Nitratos (NO₃) | 5-15 mg/L | No es un coral de ULNS: con NO₃ <1 mg/L los pólipos se contraen y palidecen |
| Fosfatos (PO₄) | 0,05-0,15 mg/L | Valores indetectables provocan pérdida de tejido a medio plazo |
| Iluminación | PAR 30-80 µmol·m⁻²·s⁻¹ | Máximo tolerable ~120; fotoperiodo 8-10 h; predominio de azul |
| Flujo | Suave e indirecto (5-15 cm/s) | Suficiente para arrastrar detritos sin impedir la expansión del pólipo |
Luz: es un coral de sombra obligado. Colócalo bajo cornisa, en el tercio inferior o en una zona con sombreado parcial por roca viva. En sistemas con LED de alta potencia, un solo punto a 150 µmol·m⁻²·s⁻¹ durante 6 h basta para inducir blanqueamiento parcial en dos o tres semanas. La aclimatación correcta se hace con pantallas de malla (2-3 capas retiradas a lo largo de 4-6 semanas) o en zona de penumbra permanente. La señal de exceso de luz es inequívoca: el tejido interpolicular se afina, aparecen áreas blancas en la periferia del disco oral y el pólipo permanece retraído durante el fotoperiodo.
Flujo: necesita movimiento indirecto, tipo vaivén. La corriente directa de una bomba de circulación impide la expansión, impide la alimentación y acaba erosionando el tejido del lado expuesto. Igualmente problemática es la zona de calma total: la sedimentación sobre los discos orales provoca retracción crónica y colonización por algas filamentosas en el esqueleto muerto. El compromiso: un punto con movimiento suave pero continuo que mantenga limpios los valles entre corallites.
Química y nutrición: mantén NO₃ en 5-15 mg/L y PO₄ en 0,05-0,15 mg/L; es uno de los pocos LPS que se beneficia claramente de sistemas con nutrientes moderados. Alimenta 2-3 veces por semana con rotíferos, mysis pequeños picados, copépodos o pellets de 0,5-1 mm; la respuesta es lenta (10-20 minutos hasta la captura), así que dosifica en zona de flujo mínimo y sin peces cleptoparásitos cerca. Un ejemplar bien alimentado duplica el número de pólipos en 12-18 meses; uno mantenido solo con luz permanece estable pero no crece.
6. 🪨 COLOCACIÓN, CRECIMIENTO Y FRAGGING
Colocación: tercio inferior, sobre roca horizontal o en el borde de una cornisa, también sobre el sustrato aren
7. 🤝 COMPATIBILIDAD CON PECES E INVERTEBRADOS
Blastomussa merleti es, entre los LPS, uno de los menos agresivos: sus cálices de 3-5 mm concentran una carga de nematocistos baja y no se han descrito tentáculos barredores ni extrusión de filamentos mesentéricos en competición, a diferencia de Euphyllia, Catalaphyllia o Lobophyllia. Puedes mantenerlo a 4-6 cm de otro LPS sin agresión recíproca, pero también pierde cualquier disputa por espacio frente a colonias de crecimiento rápido: Zoanthus, Palythoa, Briareum, Pachyclavularia o Discosoma lo cubren en semanas. Su sitio es la roca viva, en pared vertical o bajo extraplomo, nunca en la arena: los gobios de fondo del género Valenciennea lo entierran y los ermitaños lo voltean.
- Peces seguros: Anthias, Chromis, Cirrhilabrus, Paracheilinus, Pseudocheilinus hexataenia, Ecsenius, Salarias, Zebrasoma y Ctenochaetus (los ctenoquetos raspan roca, pero no arrancan tejido). Los antias y chromis, además, aportan alimento particulado que los pólipos capturan.
- Riesgo moderado: los ángeles enanos Centropyge loricula</em
10. 💎 CONSEJOS DEL EXPERTO
Diez puntos que marcan la diferencia entre mantener Blastomussa merleti con vida y conseguir que crezca de forma medible. Todos parten de una premisa: es un LPS faceloide de aguas profundas, con coralitos de 5-8 mm, ramas tubulares de ~1 cm de diámetro y colonias que en la naturaleza rara vez superan los 30 cm en zonas turbias, sombreadas y de pendiente profunda (0-30 m) del Indo-Pacífico occidental.
- Confirma la especie antes de nada. B. merleti (Wells, 1961; Lobophylliidae) es faceloide: cada coralito nace sobre una rama tubular propia. B. wellsi es plocoide, con coralitos de 10-15 mm fusionados sobre una base común. La confusión es frecuente en el comercio y las necesidades de luz no son intercambiables: merleti tolera mucha menos irradiancia.
- Luz medida, no estimada. Su ventana óptima está en 30-80 µmol·m⁻²·s⁻¹ (PAR) con picos máximos de 100. Colócala en paredes verticales de la roca, bajo salientes o en la penumbra lateral de la iluminación principal. Un foco LED directo la oscurece en 2-3 semanas (zooxantelas densas, tejido marrón) y acaba produciendo recesión del cenénquima.
- Movimiento suave y oscilante. Velocidad del agua de 5-10 cm·s⁻¹, sin flujo laminar directo. Un chorro de bomba incidiendo sobre los pólipos los mantiene parcialmente retraídos y favorece infecciones bacterianas en el punto de impacto.
- Alimentación nocturna dirigida. Tres veces por semana, 30-45 minutos después del apagado: rotífero congelado, copépodo (ciclope), nauplios de Artemia y mysis troceado. Tamaño de partícula eficaz: 0,2-1 mm. Usa pipeta de 5 ml descargando a 2-3 cm del pólipo, sin arrastrar el alimento al resto del acuario. En sistemas oligotróficos (NO₃ < 2 mg/L) esta pauta no es opcional.
- Respeta el espacio químico. Mantén 8-10 cm de separación de Sarcophyton, Briareum, Galaxea y cualquier Euphyllia. Carbón activo a razón de 100-150 ml/100 L, renovado cada 3-4 semanas, es la medida más rentable contra la alelopatía en acuarios mixtos.
- Cuidado con los baños de coral. El tejido de merleti es delicado: los baños de yodo concentrados y los baños prolongados de peróxido causan daño tisular difuso. Para platelmintos usa prazicuantel a 5 mg/L durante 6 horas en recipiente oscuro y con aireación, y aclimata siempre por goteo.
- Estabilidad de alcalinidad por encima de la cifra. Tolera 7,5-8,5 dKH, pero no oscilaciones superiores a 0,5 dKH en 24 h. Con dosificación de dos partes o reactor, programa la dosis en 12-24 microimpulsos diarios.
- Fragmentación correcta. Corta con alicate de hueso sobre la rama tubular, nunca a través del coralito. Deja 3-4 pólipos por fragmento, pega con cianoacrilato gel en el punto de corte seco y deja curar en zona de flujo bajo y luz tenue 3-4 semanas. Cicatriza mejor si el corte es limpio y perpendicular.
- Protocolo anti-jelly. Ante un pólipo con masa blanquecina-gelatinosa (infección por ciliados), sifona de inmediato, aísla la colonia, corta 5 mm por encima del margen necrótico y descarta el fragmento afectado. No intentes tratar la colonia completa in situ: la progresión es de 24-48 h.
- Mide el crecimiento con foto mensual. En condiciones óptimas produce 0,3-1 pólipo nuevo al mes; por debajo de eso hay un factor limitante (luz, alimento o alcalinidad). Fotografía la colonia con regla y misma exposición cada 30 días: es el único dato objetivo.
11. 📅 CALENDARIO DE CUIDADOS
Estación Iluminación y fotoperiodo Alimentación Química y test Mantenimiento y observaciones Invierno (dic-feb) 8-9 h de fotoperiodo; sin cambios de rampa ni de intensidad. Revisa que la penumbra elegida siga siéndolo tras cambiar tubos o ajustar LED. 3 tomas semanales dirigidas. Añade una cuarta si el acuario está muy poco cargado de peces. Temp 24-25 °C; vigila el descenso nocturno (calefactor). pH puede caer por CO₂ doméstico con ventanas cerradas: airea o usa refugio con Chaetomorpha en fotoperiodo inverso. Limpieza anual de bombas y skimmer. Revisa Mg (1.290-1.350 mg/L): es el parámetro que más se descuida en invierno. Primavera (mar-may) Mantén PAR. Es buen momento para reposicionar colonias que hayan crecido hacia la sombra. Sube a 4 tomas semanales: recuperación tras el invierno y mayor demanda metabólica. Test completo (Ca, KH, Mg, NO₃, PO₄). Objetivo: NO₃ 2-10 mg/L, PO₄ 0,03-0,10 mg/L. Inspección de platelmintos y caracoles depredadores (Epitonium) con lupa tras el apagado. Ventana ideal para fragmentar si los parámetros llevan 6 semanas estables. Verano (jun-ago) Reduce 30-40 min el fotoperiodo si la temperatura sube; la luz extra solo añade estrés térmico. Mantén 3 tomas; suspende si la temperatura supera 27 °C, el coral deja de digerir y el alimento se descompone. Temp máxima 26 °C (jamás 28 °C sostenidos). Controla salinidad por evaporación: 34-35 ppt con refractómetro calibrado. Vigilancia diaria de temperatura; enfriador o ventiladores con relleno automático. No hagas cambios de agua grandes con agua muy fría. Otoño (sep-nov) Restituye fotoperiodo invernal de forma gradual (15 min/semana). Vuelve a 3 tomas; refuerza con copépodo vivo si está disponible. ICP anual para descartar metales y déficit de oligoelementos. Ajusta KH a 8,0 dKH. Renueva carbón activo y resinas. Revisa que la colonia no haya sido invadida por Briareum o zoantídeos: despega y traslada si es necesario. 12. ✅ CONCLUSIÓN
Blastomussa merleti no es un coral para iniciarse, y quien lo vende como «LPS fácil» comete un error de identificación o de expectativas. Es un coral de nicho: exige un hueco sombreado, flujo tenue, alimentación dirigida frecuente y una estabilidad química que muchos acuarios no sostienen. A cambio, ofrece algo difícil de encontrar en la acuariofilia marina: color intenso (rojo vino, verde metálico, a veces con centros contrastados) en zonas del tanque donde casi ningún otro coral con esqueleto calcáreo prospera.
Los tres factores críticos, por orden de impacto, son: irradiancia baja y estable (30-80 µmol·m⁻²·s⁻¹), alimentación heterótrofa regular con partículas de 0,2-1 mm, y ausencia de competencia química con octocorales y corales agresivos. La alcalinidad estable a 7,5-8,5 dKH y una temperatura de 24-26 °C son el marco; sin ellas, lo anterior no compensa. Su crecimiento es lento —0,3-1 pólipo al mes— y por tanto la paciencia no es una virtud opcional sino parte del método.
El error más común en acuarios avanzados no es la falta de cuidado, sino el exceso de intervención: subir la luz porque «se ve apagado», baños de yodo preventivos innecesarios, o fragmentar una colonia que aún no ha duplicado su número de pólipos. Si respetas su nicho natural —pared vertical, penumbra, agua limpia y comida fina—, tendrás una colonia que se expande rama a rama durante años y que se convierte en uno de los puntos focales más interesantes del arrecife artificial. Documenta con fotos mensuales, mantén la rutina y no persigas cifras perfectas: persigue cifras constantes.
🔎 ANÁLISIS AVANZADO: CASOS Y AJUSTES FINOS
Blastomussa merleti calcifica a un ritmo bajo —coralitos de 5-8 mm y crecimiento faceloide— por lo que su consumo de carbonatos es marginal frente al de un SPS ramificado; el riesgo real no es la deficiencia, sino el arrastre de la dosificación. Con Ca 410-430 mg/L, KH 7,0-8,0, Mg 1300-1350 mg/L y salinidad 35 ppt, la especie tolera bien los valores absolutos moderados, pero su cenosarco fino reacciona a la deriva: variaciones superiores a 0,5 dKH en 24 h producen retracción y exposición del esqueleto basal en 48-72 h. Ajusta la dosificación midiendo el consumo del acuario completo, no el de la colonia aislada, y verifica con ICP el yodo (0,03-0,06 mg/L) y el potasio (390-410 mg/L), cuyo descenso se asocia a palidez en colonias mantenidas con sal sintética. En nutrientes es permisiva: NO3 5-15 mg/L y PO4 0,06-0,12 mg/L sostienen la densidad de zooxantelas sin que aparezcan algas filamentosas entre ramas, siempre que el flujo impida el depósito de detritos.
La especie carece de tentáculos barrenderos eficaces y su densidad de nematocistos es baja, lo que la convierte en competidora pasiva. El daño llega por tres vías: alelopatía de octocorales (terpenos de Sinularia, Sarcophyton y Lobophytum, que inducen retracción y pérdida de color a 30-50 cm), tentáculos de Galaxea y Euphyllia (alcance de 15-20 cm) y sobrecrecimiento físico de Zoanthus, Palythoa, Briareum o Montipora incrustante, que invade la base de las ramas y asfixia el cenosarco. Medidas concretas: separación mínima de 20 cm de cualquier blando, 150-200 g de carbón activado por 500 L renovados cada 3-4 semanas y skimmer con ozono a 300-350 mV de ORP si mantienes acuario mixto. No la sitúes en la trayectoria de descarga de una bomba que reciba el efluvio de una colonia de blando: la concentración local de aleloquímicos es la que mata, no la distancia. Una cuarentena de cuatro semanas con carbón evita introducir colonias ya comprometidas.
Su fotoadaptación es de sombra: zooxantelas poco densas y alta clorofila por célula; el rango útil está en 30-80 µmol/m²/s de PAR, con picos tolerables de 120. Si subes de 50 a 200 PAR de golpe verás expansión inicial —hambruna de carbono—, seguida de retracción y palidez a las 2-3 semanas, con recuperación en 6-8 si vuelves a la posición previa. Sube un 20-30 % de PAR por semana y mide con sensor, no con «altura en el acuario». En flujo, el óptimo es indirecto y alterno, 5-10 renovaciones por hora con movimiento pendular; velocidades laminares superiores a 15 cm/s sobre el pólipo lo cierran, mientras que menos de 3 cm/s permite que se acumule sedimento entre coralitos y desencadena necrosis del cenosarco. La mejor ubicación reproduce su hábitat natural: paredes verticales, bajo salientes, con luz reflejada y corriente tangencial, nunca frontal.
Tres fallos poco frecuentes requieren lectura propia. Primero, el «bail-out» de pólipos: ante estrés térmico o químico, pólipos individuales se desprenden del esqueleto y flotan; no están muertos, pueden fijarse y generar una colonia nueva
❓ PREGUNTAS FRECUENTES
¿Cómo distingo Blastomussa merleti de B. wellsi?
La diferencia es métrica y estructural, no de color. B. merleti presenta coralitos de 3–5 mm de diámetro, con dos ciclos septales (6+6, ocasionalmente 6+6+6), septos finos, exsertos y de margen dentado, dispuestos en una colonia faceloide de ramificación dicotómica donde cada rama agrupa 1–3 coralitos y el coenosarco es mínimo. B. wellsi alcanza 8–14 mm por coralito, con tres o cuatro ciclos septales y un coenosarco carnoso que engloba varios centros. En la práctica: si los pólipos miden menos de 6 mm y se retraen por completo dentro de un tubo calcáreo fino, es merleti; si el tejido carnoso común domina sobre el esqueleto, es wellsi.
¿Qué iluminación y corriente necesita exactamente?
Es un coral de sombra y aguas turbias: en la naturaleza coloniza techos de cuevas, paredes verticales y caras inferiores de corales masivos, desde aguas someras hasta unos 40–50 m. En el acuario, la franja útil está entre 30 y 100 µmol·m⁻²·s⁻¹ de PAR; por encima de 150 µmol·m⁻²·s⁻¹ el disco oral se retrae, pierde color y el tejido se adelgaza. Colócalo en zona baja o lateral, con la colonia parcialmente orientada hacia abajo. La corriente ideal es indirecta y moderada (5–15 cm·s⁻¹), laminar-turbulenta; el chorro directo de una bomba erosiona el coenosarco y rompe las ramas, que son quebradizas.
¿Qué parámetros químicos debo mantener?
Temperatura 24–26 °C (rango tolerable 23–28 °C), salinidad 35 g·L⁻¹ (densidad 1.025–1.026), alcalinidad 7,5–9,0 dKH, calcio 420–450 mg·L⁻¹, magnesio 1280–1350 mg·L⁻¹, potasio ≈400 mg·L⁻¹. A diferencia de muchos LPS, tolera nutrientes discretamente altos: NO₃ 5–20 mg·L⁻¹ y PO₄ 0,05–0,20 mg·L⁻¹ reflejan su hábitat natural y mantienen la coloración. Lo que no tolera son oscilaciones: variaciones superiores a 1 dKH al día o caídas de salinidad por reposición provocan reabsorción de tejido desde la base de las ramas.
¿Es autótrofo o hay que alimentarlo?
Es zooxantelado, pero la heterotrofia incrementa de forma medible la calcificación y la tasa de gemación (Houlbrèque & Ferrier-Pagès, 2009). El tamaño de sus pólipos limita la presa a menos de 1 mm: nauplios de Artemia instar I, rotíferos, copépodos harpacticoideos, huevos de ostra y alimento congelado de granulometría fina. Alimenta 2–3 veces por semana, preferiblemente tras el apagado, ya que extiende los tentáculos de noche. La respuesta de captura es rápida pero la digestión lenta: no satures el pólipo ni alimentes a diario, porque el alimento no consumido se acumula entre las ramas y desencadena infecciones ciliadas.
¿Cómo lo fragmento y lo fijo sin perder tejido?
Corta con cizalla de hueso o disco de diamante en la base de una rama, nunca por la mitad de un coralito: cada fragmento debe contener al menos 3–4 coralitos funcionales. Realiza el corte fuera del agua el menor tiempo posible, aclara con agua del acuario y aplica un baño de yodo diluido durante 5–10 minutos. Fija con cianoacrilato de gel, apoyando solo la base esqueletal secada con papel y dejando el tejido vivo libre de pegamento; el exceso de cianoacrilato sobre coenosarco produce necrosis local. La cicatrización tarda 7–14 días y el crecimiento es lento: 5–10 mm de extensión anual en condiciones óptimas.
¿Por qué se retrae o reabsorbe tejido en el acuario?
La recesión basal casi siempre responde a causas mecánicas o químicas: alcalinidad inestable, sedimentación sobre el coenosarco, pegamento sobre tejido vivo o corriente directa. Si el tejido se desprende como una masa marrón gelatinosa, sospecha una infección por ciliados (“brown jelly”), habitual tras el transporte o el corte, y trata con baño de yodo y aislamiento. Revisa también platelmintos del género Waminoa sobre el coenosarco y caracoles Coralliophila en la base. En todos los casos, mejora la estabilidad de dKH y evita el flujo fuerte antes de cualquier otro cambio.
📚 REFERENCIAS
- Wells, J. W. (1961). Notes on Indo-Pacific scleractinian corals. Part 3. Pacific Science, 15(2), 175–180.
- Veron, J. E. N. (2000). Corals of the World (Vol. 2). Australian Institute of Marine Science, Townsville.
- Budd, A. F., Fukami, H., Smith, N. D., & Knowlton, N. (2012). Taxonomic classification of the reef coral family Mussidae (Cnidaria: Anthozoa: Scleractinia). Zoological Journal of the Linnean Society, 166, 465–529.
- Borneman, E. H. (2001). Aquarium Corals: Selection, Husbandry, and Natural History. Microcosm Ltd. / T.F.H. Publications, Neptune City.
- Sprung, J., & Delbeek, J. C. (1997). The Reef Aquarium (Vol. 2). Ricordea Publishing, Coconut Grove.
- Houlbrèque, F., & Ferrier-Pagès, C. (2009). Heterotrophy in tropical scleractinian corals. Biological Reviews, 84(1), 1–17.
Especialista en Ecología Acuática, Botánica Tropical y Acuariofilia
© 2026 Roberto Parra Jiménez – Biólogo Marino (UH Mānoa). Todos los derechos reservados.
Deja una respuesta